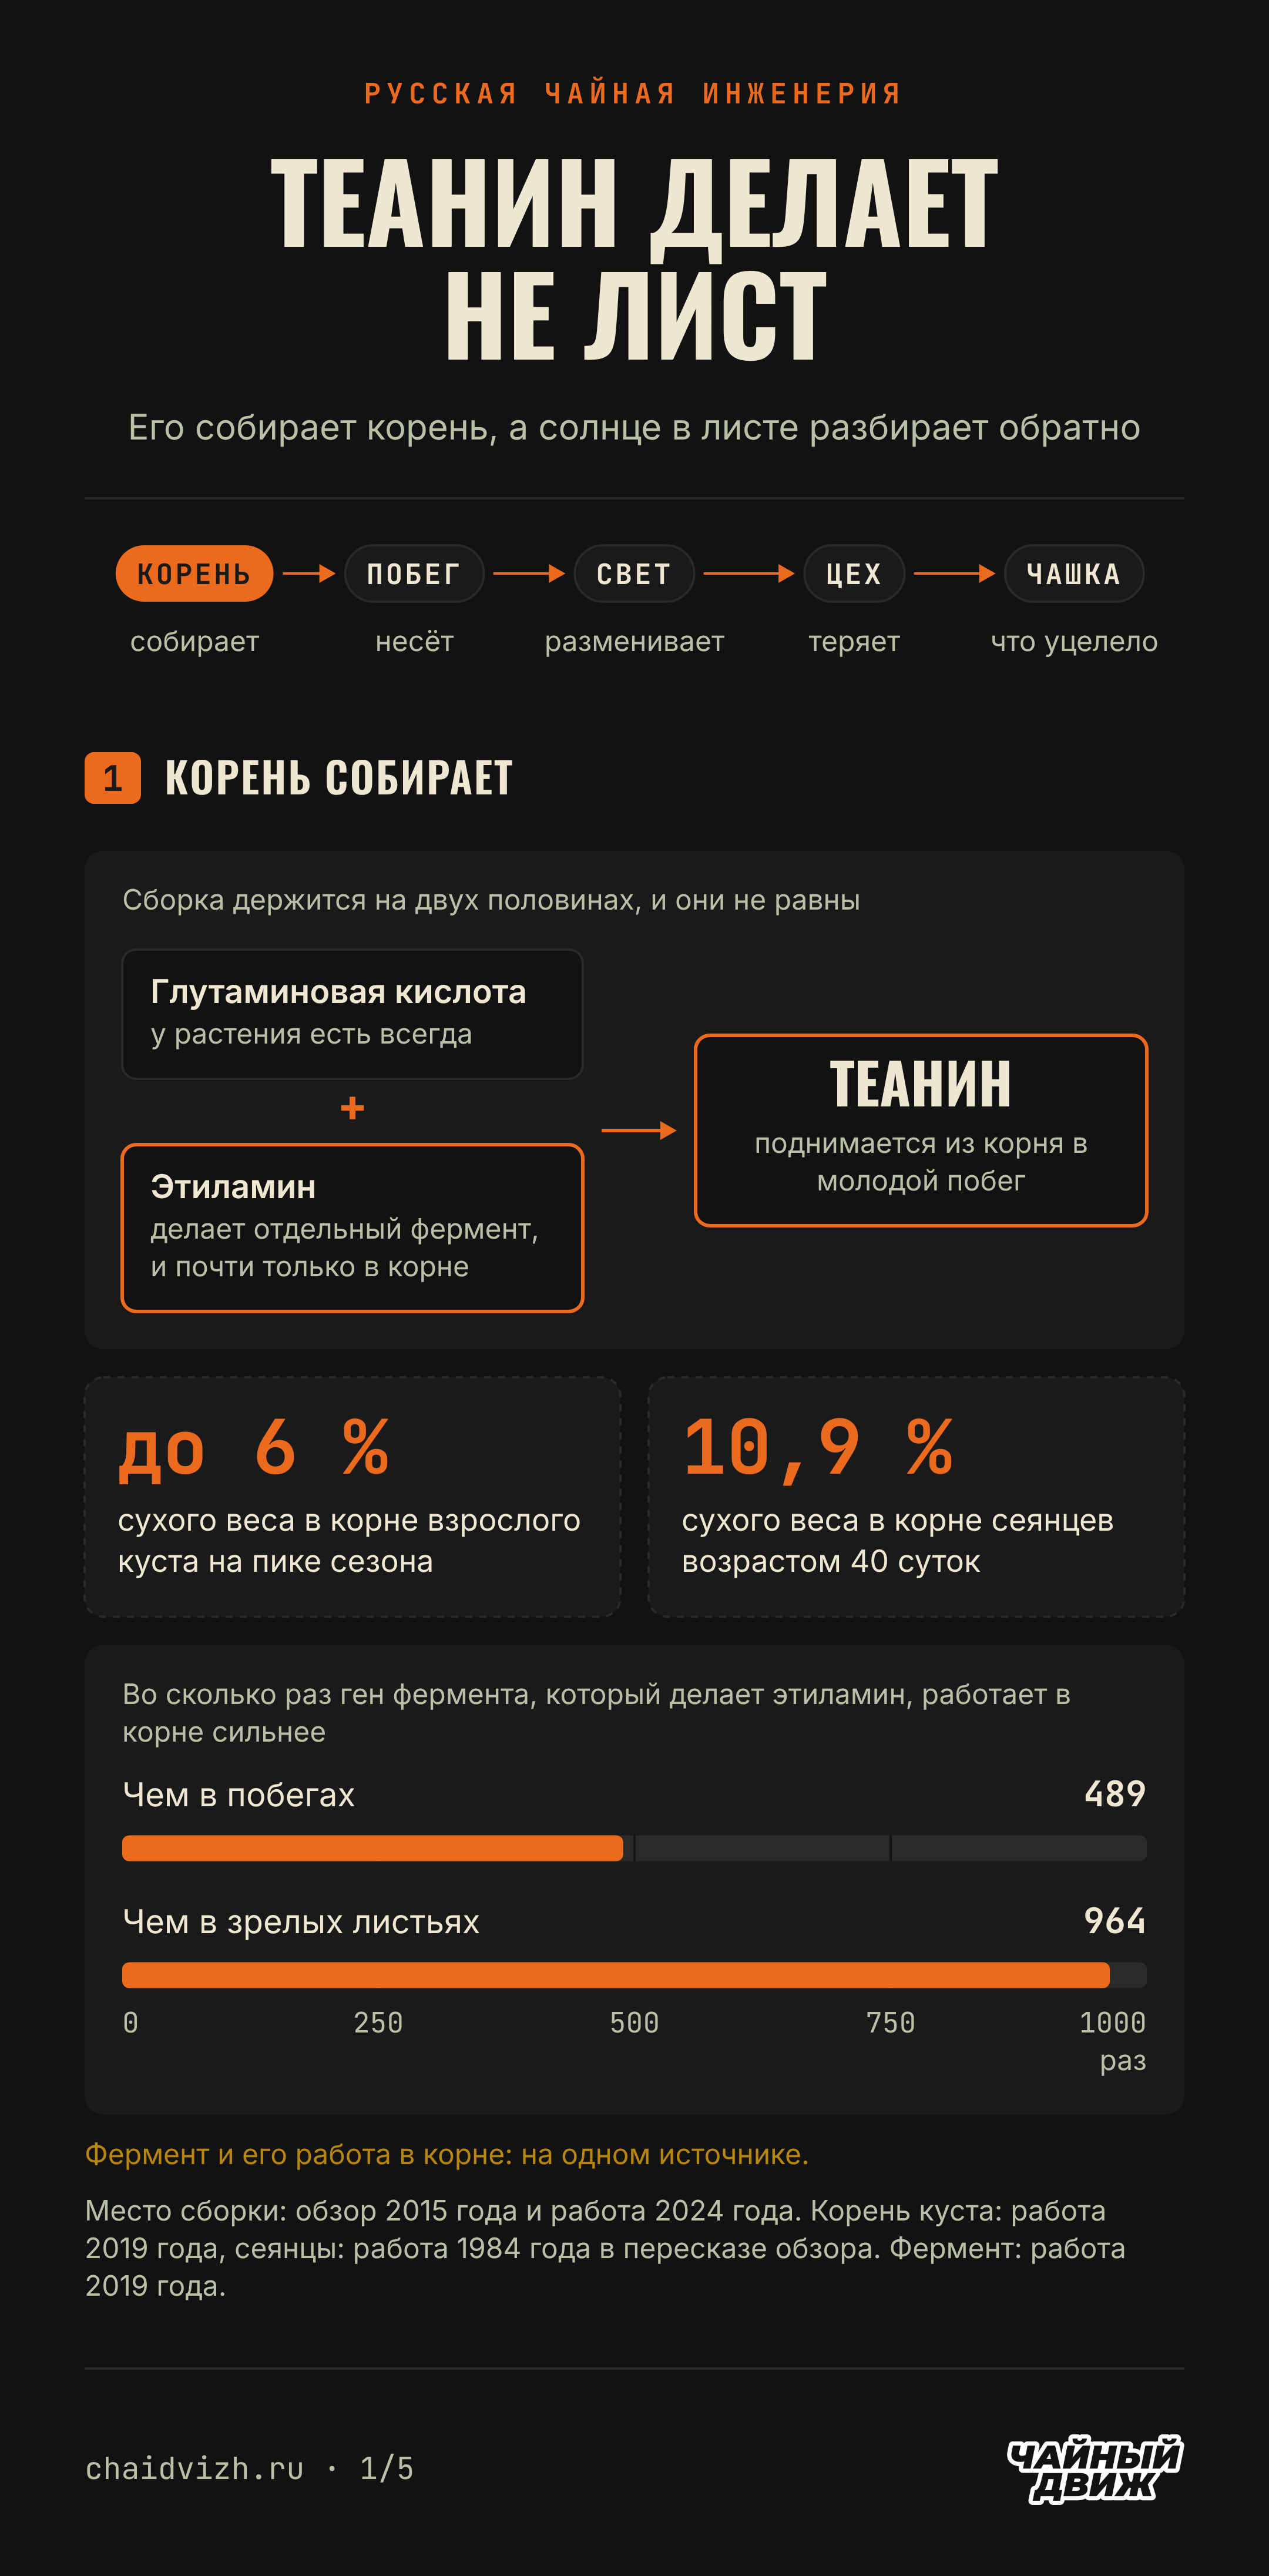
Теанин в чайном листе делает не лист. Его собирает корень и отправляет наверх, а солнце в листе разбирает обратно.
Сборка идёт в корне: там теанина больше, чем в любой другой части куста. Оттуда он поднимается в молодой побег и попадает под свет, а свет запускает фермент, который режет теанин на глутаминовую кислоту и этиламин. Этиламин при этом не пропадает: из него растение строит катехины, то есть горечь и вяжущий след. Поэтому чай и затеняют перед сбором.
Дальше вступает цех. Собранный лист начинает терять теанин от одной только потери воды: за сутки завяливания его становится вдвое меньше. Кофеин на той же стадии, наоборот, прибавляет. Готовый чай теанин держит крепко: за четыре месяца хранения он теряет считанные проценты.
Что с этим делать
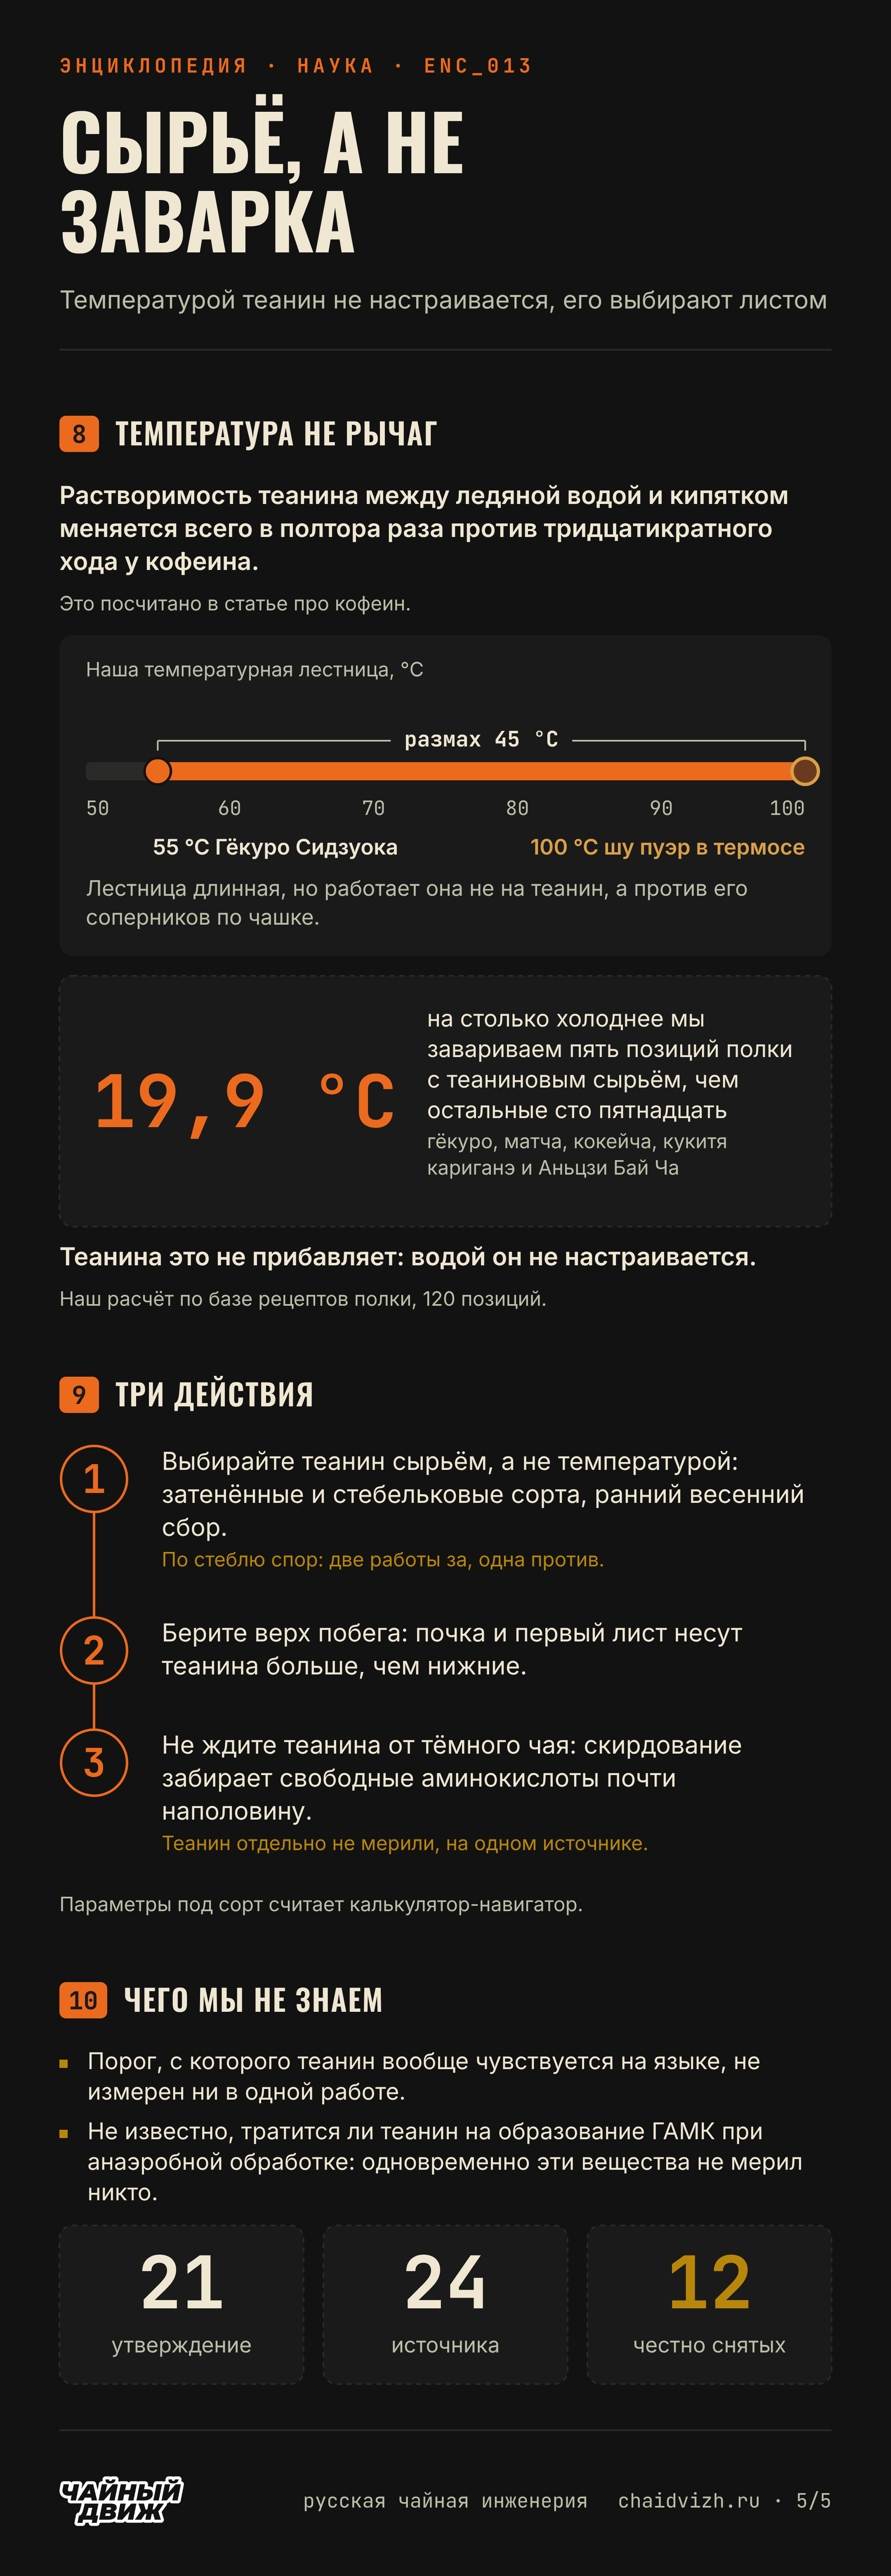
Выбирайте теанин сырьём, а не температурой: затенённые и стебельковые сорта, ранний весенний сбор.
Берите верх побега: почка и первый лист несут теанина больше, чем нижние.
Не ждите теанина от тёмного чая: скирдование забирает свободные аминокислоты почти наполовину.
19,9 °CНа столько холоднее мы завариваем пять теаниновых позиций полки, чем остальные сто пятнадцать. Теанина это не прибавляет: водой он не настраивается.
Чего мы не знаем
Порог, с которого теанин вообще чувствуется на языке, не измерен ни в одной работе. И не известно, тратится ли теанин на образование ГАМК при анаэробной обработке: одновременно эти вещества не мерил никто.
L-теанин это гамма-глутамилэтиламид, амид глутаминовой кислоты и этиламина, и в заметных количествах он встречается только в чайном растении. Собирает его корень, а не лист: оттуда теанин поднимается в молодой побег. Свет, возраст листа и цех его разбирают, поэтому в чашку приходит то, что уцелело по дороге от корня до сушки.
Разбор
Что это за молекула
Теанин выделили из гёкуро и описали в 1950 году, сразу и правильно: бесцветные иглы, формула C7H14O3N2, плавление в полосе 217 по 218 °C с разложением, при гидролизе почти количественно распадается на L-глутаминовую кислоту и этиламин. Отсюда и устройство молекулы: это глутаминовая кислота, к которой через амидную связь пристёгнут этиламин. Молярная масса 174,20 посчитана нами по формуле.
Растворимость теанина и её почти полная независимость от температуры разобраны в статье про кофеин: там обе кривые поставлены рядом, и повторять их здесь незачем.
Делает его корень
Главное место сборки теанина это корень, а не лист. Оттуда вещество поднимается по ксилеме в молодой побег. В корне его больше, чем где-либо ещё в растении: до шести процентов сухого веса на пике сезона, а у сорокадневных сеянцев измеряли и 10,9 процента.
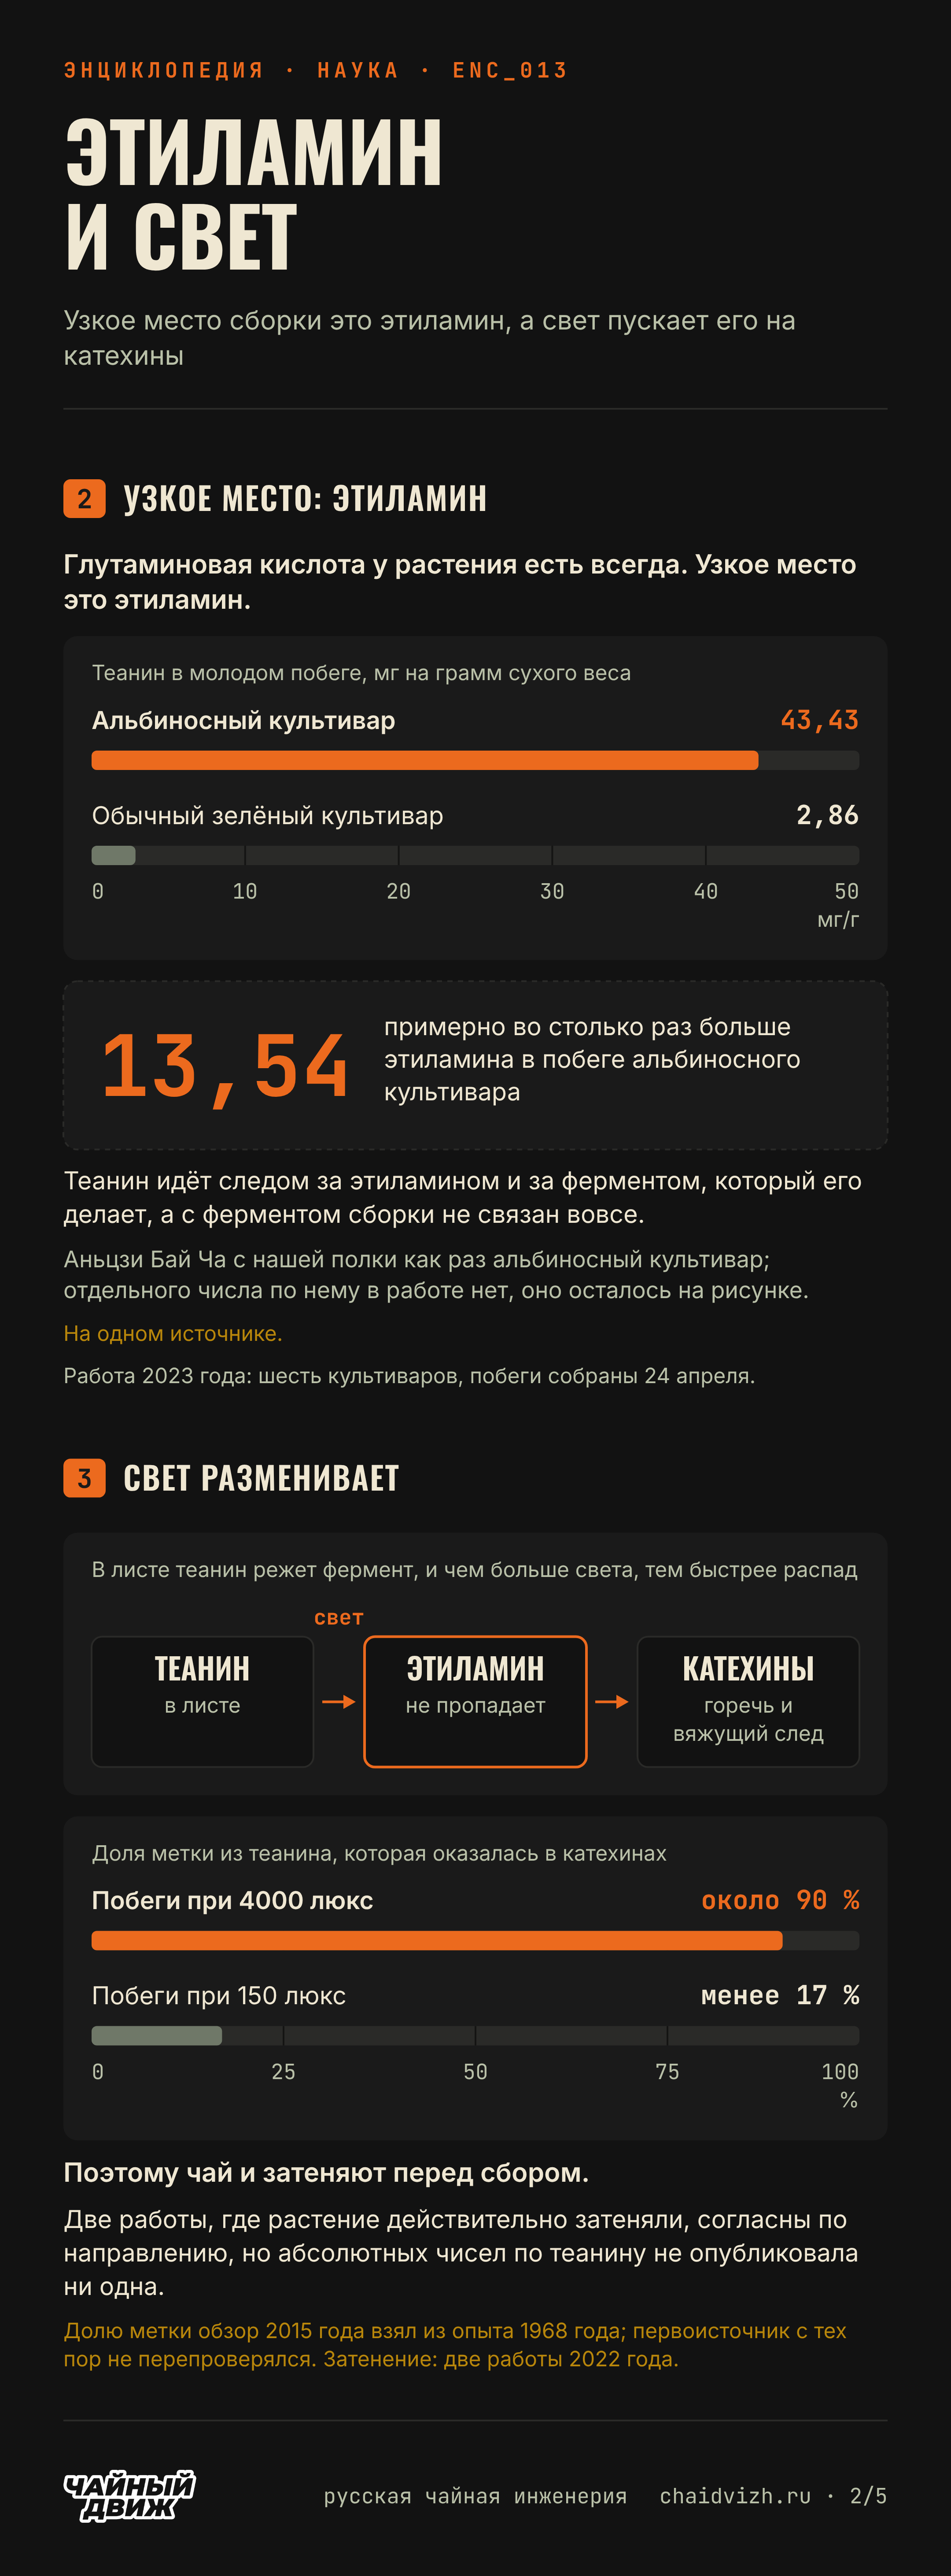
Сборка держится на двух половинах, и они не равны. Глутаминовая кислота у растения есть всегда, а этиламин делает отдельный фермент, аланиндекарбоксилаза, и работает он почти только в корне: экспрессия гена там в 489 раз выше, чем в побегах, и в 964 раза выше, чем в зрелых листьях. Узкое место это именно этиламин. У альбиносных культиваров, где теанина в побеге 43,43 мг на грамм против 2,86 у обычного зелёного сорта, содержание идёт следом за этиламином и за экспрессией этого фермента, а с экспрессией самой теанинсинтетазы не связано вовсе.
Разбирает его свет
В листе теанин гидролизует фермент, названный светочувствительным: чем больше света, тем быстрее распад. Освободившийся этиламин уходит не в отход, а в биосинтез катехинов. Опыт с меткой показывает размен прямо: у побегов, выращенных при 4000 люкс, около 90 процентов метки из теанина оказалось в катехинах, а при 150 люкс менее 17.
Отсюда понятно, зачем чай затеняют. Работы, где растение действительно затеняли, направление подтверждают согласно, но абсолютных чисел по теанину не публикует ни одна из двух: у одной величины остались на рисунке, у второй значимо выросло отношение теанина к кофеину, а не само содержание. Что именно делает затенение с составом листа, разбирает отдельная статья про агротехнику.
Сколько его в листе
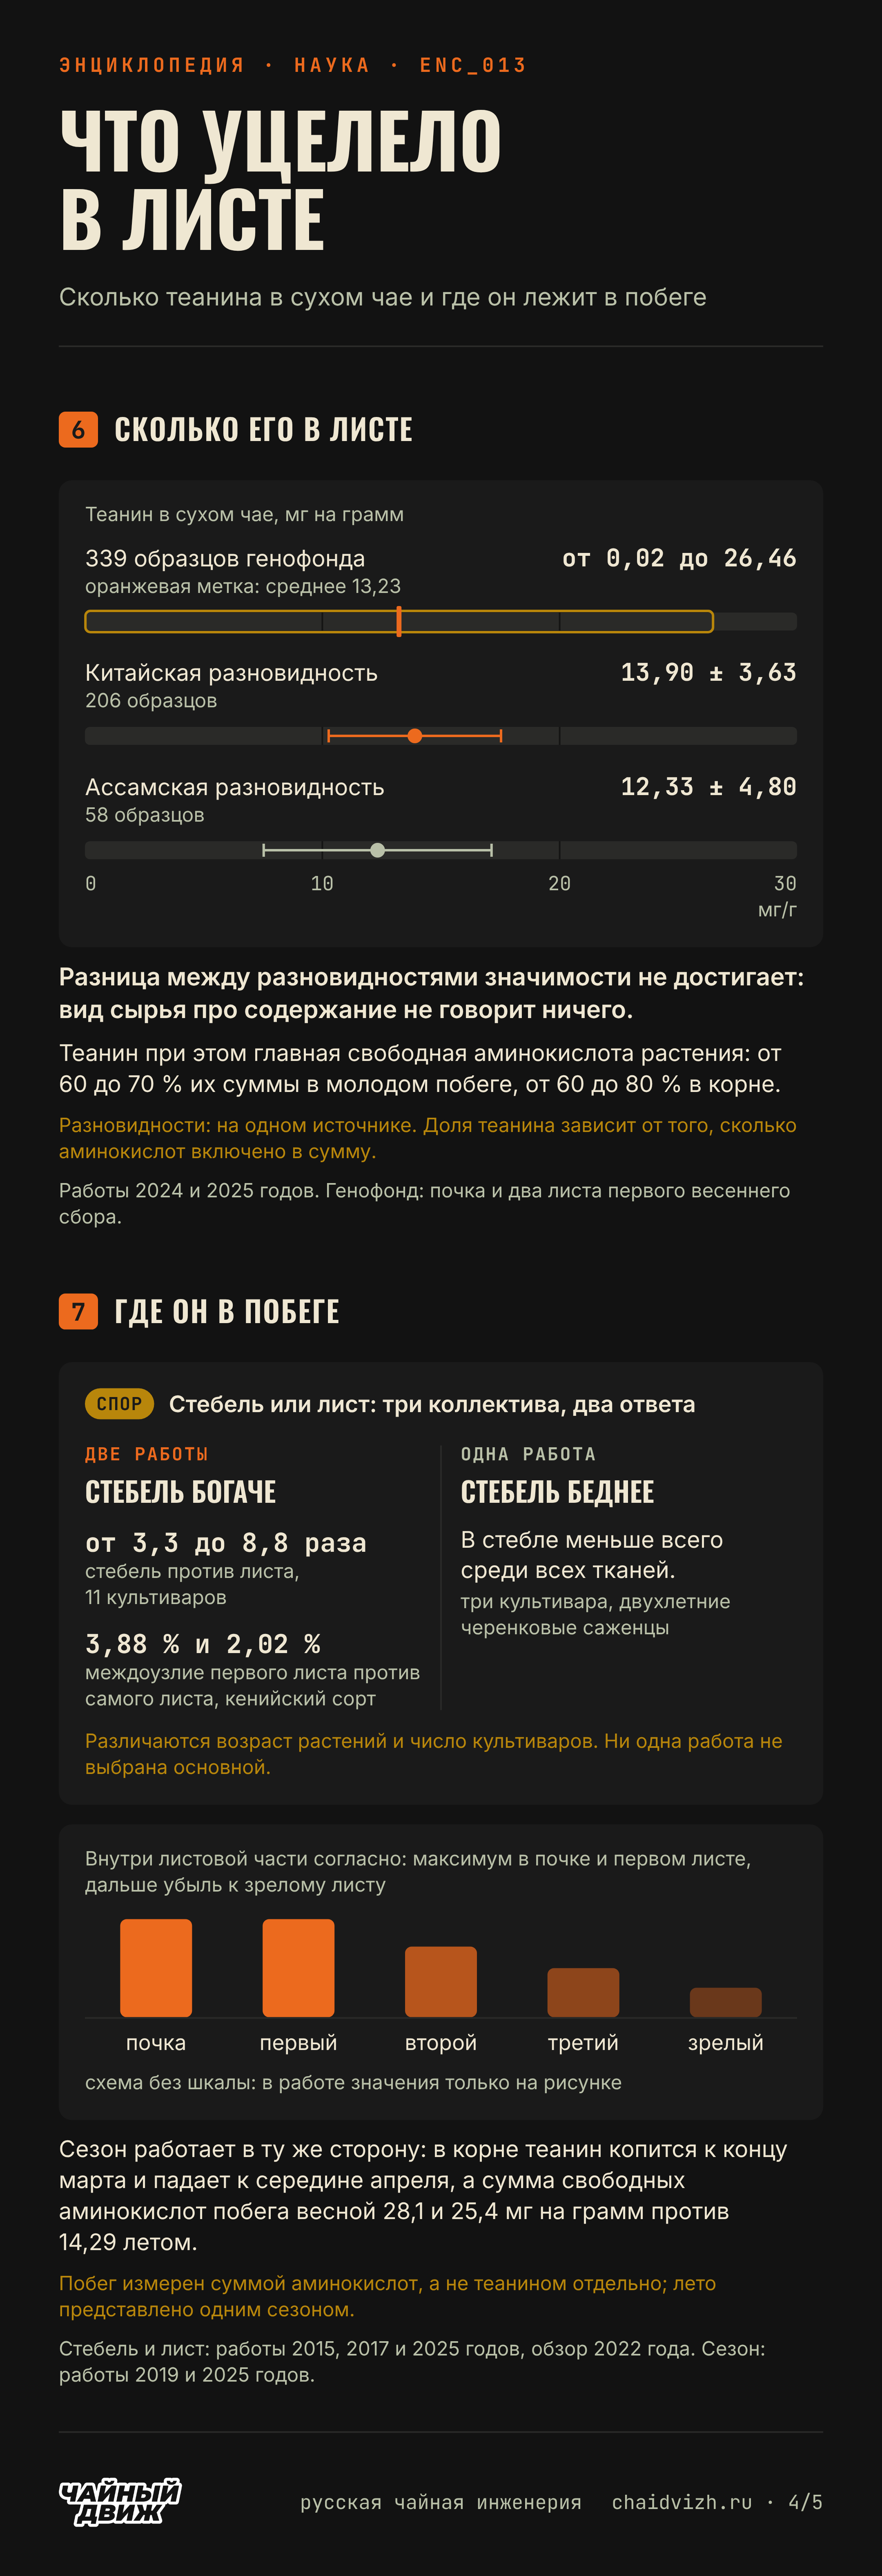
Самое широкое измерение это 339 образцов генофонда: среднее 13,23 мг на грамм при размахе от 0,02 до 26,46. Сводные оценки по нежным побегам дают от одного до двух процентов сухого веса. Разброс тут не шум, а предмет: китайская разновидность sinensis и ассамская assamica по теанину значимо не различаются вовсе, то есть вид сырья про содержание не говорит ничего.
Теанин при этом главная свободная аминокислота растения: в молодых побегах на него приходится от 60 до 70 процентов их суммы, в корне от 60 до 80. На нашей полке 120 позиций, и сырья, где теанин задан заведомо высоким, среди них ровно пять.
Где он лежит в побеге
Здесь независимые коллективы расходятся, и знать это надо до выбора сырья. Две работы находят, что стебель богаче листа: у одиннадцати культиваров отношение стебля к листу от 3,3 до 8,8 раза, а у кенийского сорта междоузлие первого листа даёт 3,88 процента против 2,02 у самого листа. Третья работа на трёх культиварах находит в стебле меньше всего среди всех тканей. Внутри листовой части направление согласное: максимум в почке и первом листе, дальше убыль к зрелому листу.
Сезон работает в ту же сторону. В корне теанин копится к концу марта и падает к середине апреля, а сумма свободных аминокислот побега от весны к лету падает почти вдвое: 28,1 и 25,4 мг на грамм весной против 14,29 летом.
Что с ним делает цех
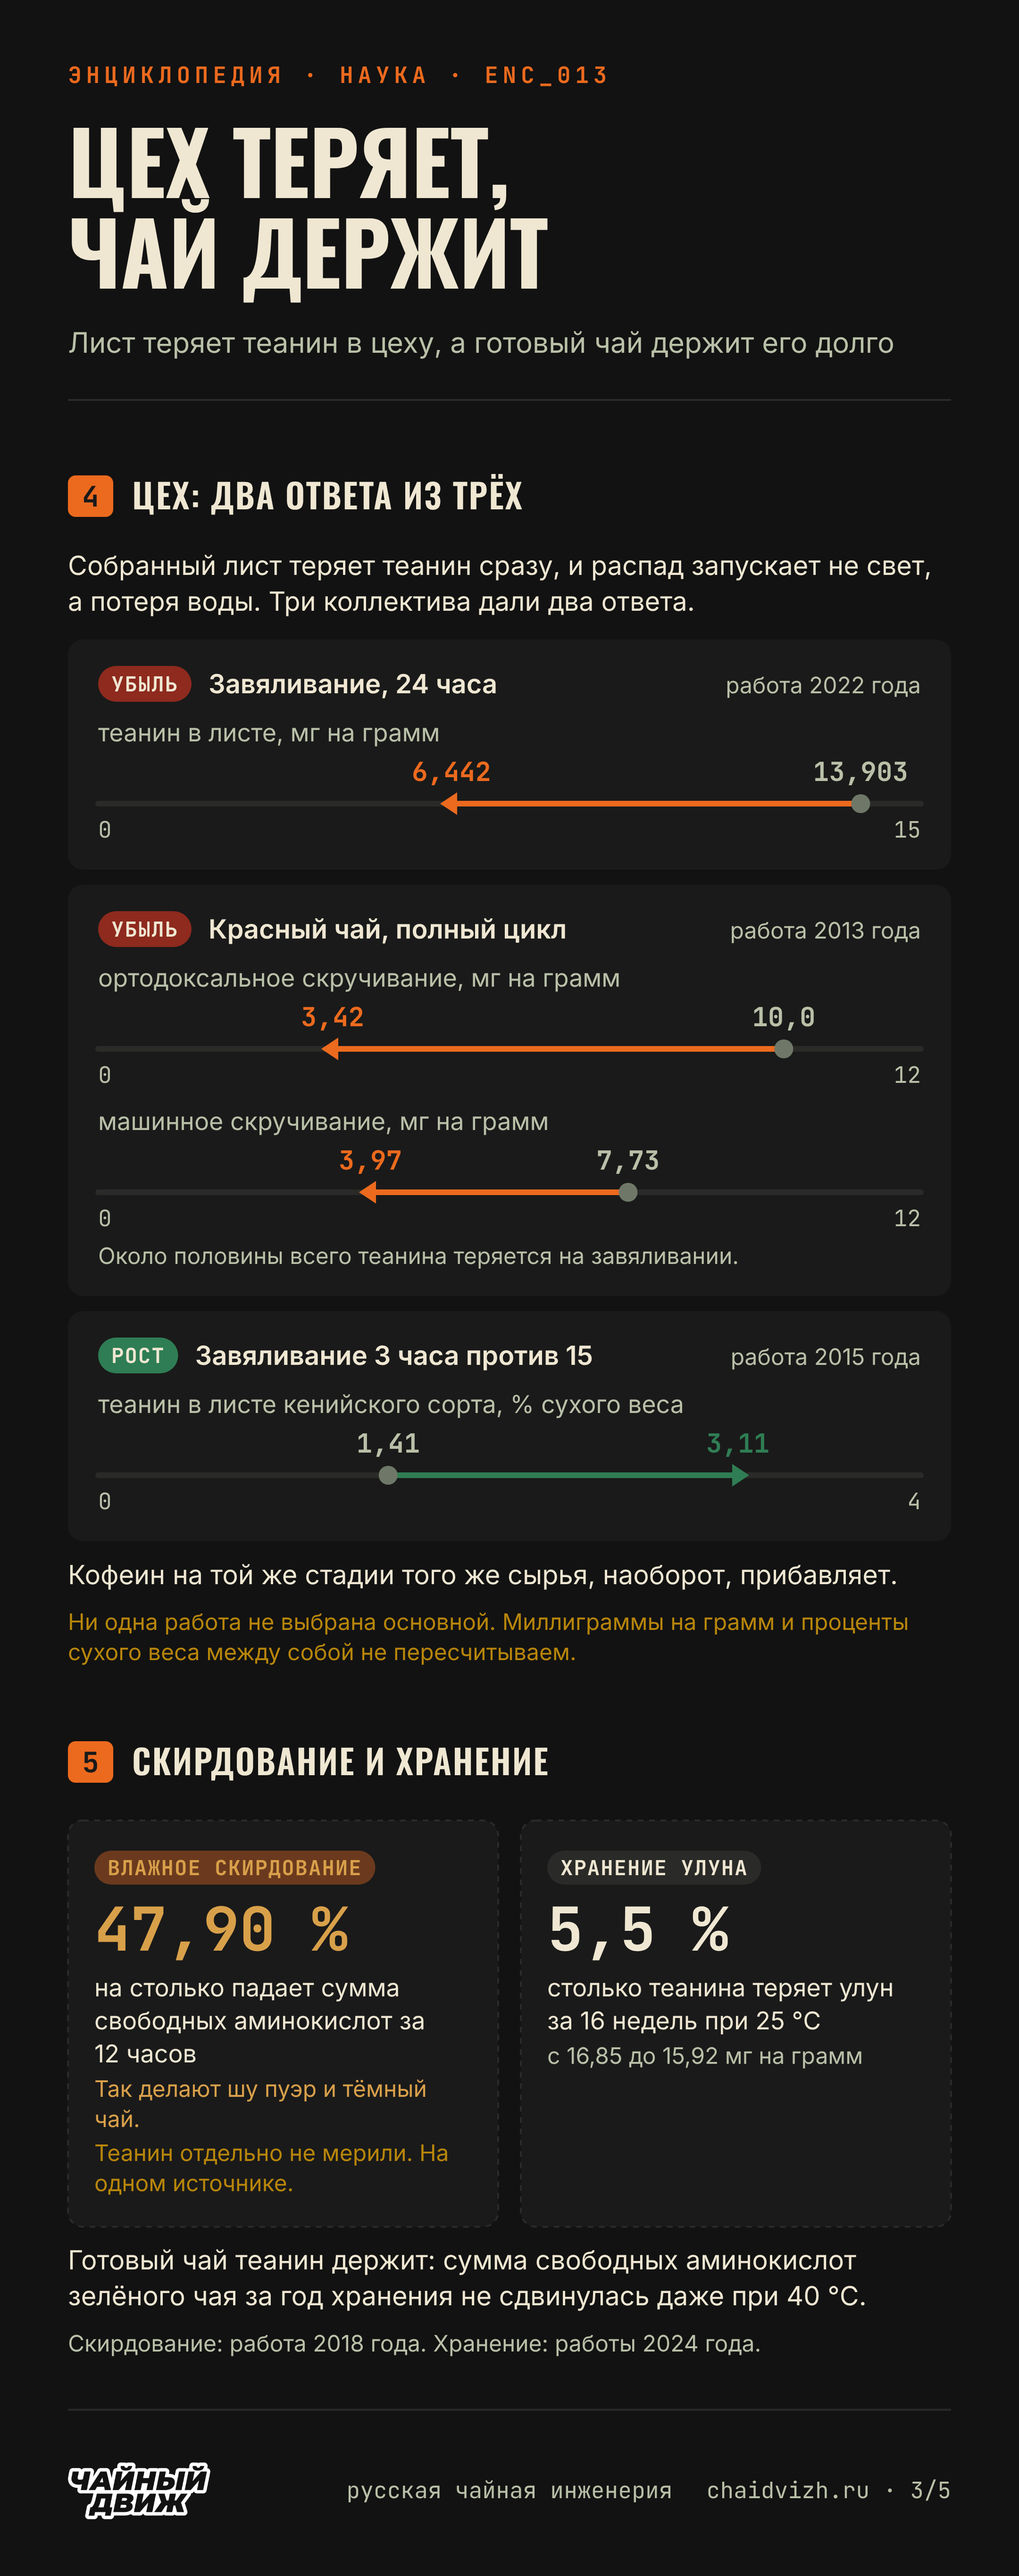
Собранный лист теряет теанин сразу, и запускает распад не свет, а потеря воды: за сутки завяливания содержание падает с 13,903 до 6,442 мг на грамм. По полному циклу красного чая измерена убыль с 10,0 до 3,42 мг на грамм при ортодоксальном скручивании и с 7,73 до 3,97 при машинном, и та же работа прямо называет завяливание местом, где теряется около половины всего теанина. Кофеин на этой же стадии того же сырья, наоборот, прибавляет.
Встречное измерение тоже есть: кенийская работа при удлинении завяливания с трёх часов до пятнадцати находит рост с 1,41 до 3,11 процента сухого веса. Три коллектива, два ответа, и выбирать между ними по удобству вывода мы не станем.
Влажное скирдование, которым делают шу пуэр и тёмный чай, обрушивает свободные аминокислоты целиком: за двенадцать часов их сумма падает на 47,90 процента. Отдельного числа по теанину эта работа не даёт, а расхождение измерений теанина в готовом пуэре разобрано в статье про расслабление.
Готовый чай, наоборот, держит теанин долго. Улун за шестнадцать недель при 25 °C потерял 5,5 процента, с 16,85 до 15,92 мг на грамм, а сумма свободных аминокислот зелёного чая за год хранения не сдвинулась даже при 40 °C.
Каким он приходит на язык
Теанин это носитель вкуса умами: он активирует рецептор T1R1 плюс T1R3 и пропорционально усиливает умами глутамата натрия. Горечи он при этом не трогает: в прямом измерении разные его концентрации горечь настоя не меняли.
Отдельная деталь для тех, кто сравнивает числа разных лабораторий. В свежем листе и в большинстве белых чаёв зеркальной D-формы теанина не обнаруживается вовсе. Она появляется при завяливании и накапливается дальше по обработке и по хранению, то есть отчасти это след цеха, а не свойство сырья.
Числовая таблица
Теанин в растении: что измерено
Что измерено
Значение
Источник
Корень взрослого куста, пик сезона
до 6 % сухого веса
s6
Корень сеянца возрастом 40 суток
10,9 % сухого веса
s2
Почка, 12 декабря
около 5 мг/г сухого веса
s6
Молодой побег, обычный зелёный культивар
2,86 мг/г сухого веса
s8
Молодой побег, альбиносный культивар
43,43 мг/г сухого веса
s8
Нежный побег, сводная оценка
от 1 до 2 % сухого веса
s3
Сухой чай, 339 образцов генофонда
среднее 13,23 мг/г, от 0,02 до 26,46
s5
Проценты сухого веса и миллиграммы на грамм между собой мы не пересчитываем: базы нормализации у работ разные, и часть работ базу прямо не оговаривает.
Теанин по стадиям цеха и при хранении
Стадия
Что измерено
Значение
Источник
Завяливание, 24 часа
теанин в листе
с 13,903 до 6,442 мг/г
s16
Завяливание, 3 часа против 15
теанин в листе
с 1,41 до 3,11 % сухого веса
s13
Полный цикл красного чая, ортодоксальное скручивание
теанин
с 10,0 до 3,42 мг/г
s17
Полный цикл красного чая, машинное скручивание
теанин
с 7,73 до 3,97 мг/г
s17
Завяливание, то же сырьё
кофеин
прибавляет
s17
Влажное скирдование, 12 часов
сумма свободных аминокислот
минус 47,90 %
s18
Хранение улуна, 16 недель при 25 °C
теанин
с 16,85 до 15,92 мг/г
s19
Хранение зелёного чая, 12 месяцев
сумма свободных аминокислот
3,18, 3,11 и 3,15 % при минус 20, комнатной и 40 °C
s24
Что это значит на практике
Наглядно
Теанин делает корень: сборка из глутаминовой кислоты и этиламина.Узкое место это этиламин, а свет меняет его на катехины.Цех теряет теанин, готовый чай его держит.Сколько теанина в сухом чае и где он лежит в побеге.Теанин выбирают сырьём, а не температурой: три действия и чего мы не знаем.
Исследования
1. L-теанин это гамма-глутамилэтиламид: при гидролизе он почти количественно распадается на L-глутаминовую кислоту и этиламин, формула C7H14O3N2, плавление в полосе 217 по 218 °C с разложением.
на одном источникемеханизм
работа Сакато, том 23 выпуск 6 журнала японского общества сельскохозяйственной химии, напечатан в 1950 году, хотя принята статья была в августе 1949 и в литературе тиражируется датировка 1949. Сверено по реферату, полный текст на японском. Там же приведено содержание в гёкуро около одного процента при заметно меньшем у сенчи. Молярная масса 174,20 посчитана нами по формуле и в работе не приводится. Пока это одна работа. Дополним раздел, когда появятся новые данные.
2. Теанин это главная свободная аминокислота чайного растения: в молодых побегах на него приходится от 60 до 70 процентов суммы свободных аминокислот, в корне от 60 до 80.
подтвержденонаблюдение
первое число получено на гибридной популяции первого поколения из 208 растений одного питомника, второе на одном культиваре методом секвенирования отдельных клеток корня. Доля зависит от того, сколько соединений включено в сумму: чем шире список аминокислот, тем ниже доля теанина, и работы этот выбор между собой не согласуют.
3. Содержание теанина в сухом чае лежит в среднем около 13,23 мг на грамм при размахе от 0,02 до 26,46, а сводные оценки по нежному побегу дают от одного до двух процентов сухого веса.
подтвержденонаблюдение
339 образцов генофонда, один флеш из почки и двух листьев первого весеннего сбора, метод это жидкостная хроматография с дериватизацией и ультрафиолетовым детектором, а не масс-спектрометрия, как иногда указывают. Базис сухого веса в методике первой работы прямо не оговорён: навеска описана как сухой чайный порошок. Второе число это сводная оценка обзорного характера внутри экспериментальной работы, а не её собственное измерение.
4. Разновидности sinensis и assamica по содержанию теанина значимо не различаются.
на одном источникенаблюдение
206 образцов sinensis дали 13,90 плюс-минус 3,63 мг на грамм, 58 образцов assamica 12,33 плюс-минус 4,80, различие не достигает значимости. Выборки собраны по разным регионам Китая и по возрасту растений не выровнены. Пока это одна работа. Дополним раздел, когда появятся новые данные.
5. Главное место биосинтеза теанина это корень, откуда вещество переносится в молодые побеги.
подтвержденомеханизм
обзор формулирует это как собственный вывод из линии работ 1960-х по 1980-е годы, современная работа получает то же на уровне отдельных клеток корня и показывает, что теанинсинтетаза и поставщик этиламина работают в разных типах клеток. Обзор при этом оговаривает, что у сеянцев способность к синтезу есть во всех органах, а корень главное место именно у взрослого куста.
6. В корне теанина больше, чем где-либо ещё в растении: до шести процентов сухого веса у взрослого куста и 10,9 процента у сеянцев.
подтвержденонаблюдение
первое число измерено на 13 культиварах с пиком 23 марта, второе взято обзором из работы Цусиды и Такео 1984 года на сорокадневных сеянцах, то есть обзор здесь посредник, а не измерение. Работа Чэнь и др. 2023 года (s6 по коллективу та же группа) даёт в корне более десяти процентов сухого веса, около 170 миллимоль, но независимым подтверждением она не является. Возраст растения и срок отбора работы между собой не согласуют.
7. Этиламин для сборки теанина даёт отдельный фермент аланиндекарбоксилаза, работающий почти только в корне.
на одном источникемеханизм
рекомбинантный белок декарбоксилирует аланин с образованием этиламина уже через два часа, а из серина этаноламин не образуется даже за сутки, то есть фермент именно аланиновый. Экспрессия в корне сорта ZC302 в 489 раз выше, чем в побегах, и в 964 раза выше, чем в зрелых листьях. Константы скорости работа не приводит. Пока это одна работа. Дополним раздел, когда появятся новые данные.
8. Накопление теанина в побеге ограничено поставкой этиламина, а не ферментом сборки.
на одном источникемеханизм
шесть культиваров, побеги собраны 24 апреля. У обычного зелёного сорта 2,86 мг на грамм сухого веса, у альбиносного 43,43, этиламина в побеге альбиносного примерно в 13,54 раза больше. Содержание теанина коррелирует с экспрессией аланиндекарбоксилазы (r = 0,995 при p менее 0,01) и с содержанием этиламина (r = 0,851 при p менее 0,05), а с экспрессией теанинсинтетазы не коррелирует. Отдельного числа по культивару Аньцзи Байча в тексте работы нет, оно осталось на рисунке. Пока это одна работа. Дополним раздел, когда появятся новые данные.
9. Свет ускоряет распад теанина в листе, и освободившийся этиламин уходит в биосинтез катехинов.
подтвержденомеханизм
доля метки (около 90 процентов при 4000 люкс против менее 17 при 150 люкс) взята обзором из работы Кито и др. 1968 года, то есть обзор посредник, а первоисточник с тех пор не перепроверялся. Современная работа независимо называет фермент CsGGT2 светочувствительным и показывает, что его экспрессия регулируется светом, но долю метки не измеряет. Фактор CsMYB73 при этом действует разнонаправленно: активирует CsGGT2 и подавляет CsGGT4.
10. Работы, где чайное растение затеняли, дают согласное направление по теанину, но абсолютных чисел не публикуют.
подтвержденонаблюдение
первая работа на культиваре Фудин Байча под затенением 85 и 95 процентов даёт порядок «95 процентов больше 85 больше контроля», числа остались на рисунке без подписанных величин; там же отмечен одновременный рост кофеина. Вторая на культиваре Ябукита в Австралии получила значимый (p менее 0,05) прирост отношения теанина к кофеину, 1,6 против 1,2, тогда как само содержание теанина не опубликовано и статистически не проверялось. Абсолютные величины по паре гёкуро и сенча живут в одной японской работе, разобранной в статье про концентрацию.
11. Где в побеге теанина больше, независимые коллективы решают по-разному: две работы находят больше в стебле и междоузлии, третья находит в стебле меньше всего.
подтвержденоспорное
подтверждено, что предмет измерялся независимо трижды, а не то, что результаты совпали. Первая работа на 11 культиварах, нежный стебель и первый лист нового побега, апрель: отношение стебля к листу от 3,3 до 8,8 раза, на лист приходится от 11 до 30 процентов содержания стебля; реферат той же работы даёт нижнюю границу 3,8, а раздел результатов 3,3. Вторая работа на кенийском сорте: междоузлие первого листа 3,88 процента сухого веса против 2,02 у самого листа, междоузлие второго листа 5,62. Третья работа на трёх культиварах и двухлетних черенковых саженцах: стебель, тоже неодревесневший, ниже всех тканей. Терминология у сторон совпадает, различаются возраст растений и число культиваров. Ни одна работа не выбрана как основная.
12. Внутри листовой части побега теанин убывает от почки к зрелому листу.
подтвержденонаблюдение
первая работа меряет почку, первый, второй, третий и зрелый лист на трёх культиварах, абсолютные значения даны только на рисунке. Второй источник это обзор, пересказывающий чужую работу без собственного измерения, и полную библиографическую запись пересказанной работы установить не удалось.
13. Теанин копится к весне и убывает к лету: в корне пик приходится на конец марта, а сумма свободных аминокислот побега от весны к лету падает почти вдвое.
подтвержденонаблюдение
первая работа на 13 культиварах, отбор с 12 декабря по 13 апреля: в почках 12 декабря около 5 мг на грамм сухого веса, пик 23 марта, к 13 апреля снижение у большинства культиваров. Вторая на 208 растениях гибридной популяции: 28,1 мг на грамм весной 2021 года и 25,4 весной 2022 против 14,29 летом 2022. Вторая работа меряет сумму свободных аминокислот, а не теанин отдельно, и лето у неё представлено одним сезоном.
14. Гидролиз теанина в собранном листе запускает потеря воды.
на одном источникемеханизм
за 24 часа завяливания влажность падает с 74,544 до 67,313 процента, а теанин с 13,903 до 6,442 мг на грамм; в варианте с чистой потерей воды влажность доходит до 65,052 процента, а теанин до 5,260. Авторы называют триггером именно потерю воды, а в качестве фермента предлагают CsPDX2.1, отобранный по гидролитической активности вне растения. Молекулярная идентичность теанингидролазы при этом не закрыта: другая линия работ называет тем же ферментом CsGGT2. Пока это одна работа. Дополним раздел, когда появятся новые данные.
15. Что делает завяливание с содержанием теанина, независимые работы решают по-разному: две находят убыль, третья находит рост.
подтвержденоспорное
подтверждено, что предмет измерялся независимо трижды, а не то, что результаты совпали. Первая работа даёт падение вдвое за сутки. Вторая на турецком красном чае прямо пишет, что наибольшая потеря теанина, почти половина, приходится на завяливание, и сверена по реферату при закрытом полном тексте. Третья на кенийском сорте находит рост с 1,41 до 3,11 процента сухого веса при удлинении завяливания с трёх до пятнадцати часов, при этом на прямом солнце за три часа теанин первого листа падает с 2,02 до 0,95 процента. Третья работа вышла у издателя с низким редакционным порогом и финансирована отраслевыми участниками чайной промышленности. Ни одна работа не выбрана как основная.
16. По полному циклу производства красного чая теанин убывает, а кофеин на стадии завяливания того же сырья прибавляет.
на одном источникенаблюдение
одно сырьё, разведённое по стадиям, два метода скручивания параллельно: с 10,0 до 3,42 мг на грамм при ортодоксальном и с 7,73 до 3,97 при машинном. Теанин готового турецкого красного чая от 0,32 до 0,43 процента, кофеин от 1,8 до 2,2 процента. Сверено по реферату, полный текст закрыт, поэтому по реферату нельзя различить, диапазон это ход по стадиям или разброс по образцам. Пока это одна работа. Дополним раздел, когда появятся новые данные.
17. Влажное скирдование обрушивает свободные аминокислоты: за двенадцать часов их сумма падает на 47,90 процента.
на одном источникенаблюдение
первичный тёмный чай, сырьё для фучжуаня и прочих прессованных, точки отбора 0, 3, 6, 9 и 12 часов, снижение начинается уже с шестого часа. Отдельного числа по теанину работа не даёт: теанин назван только во введении со ссылкой на чужую работу, а таблицы несут лишь суммарные аминокислоты. Пока это одна работа. Дополним раздел, когда появятся новые данные.
18. В готовом чае свободные аминокислоты при хранении убывают медленно.
подтвержденонаблюдение
улун при 25 °C за 16 недель потерял 5,5 процента теанина, с 16,85 до 15,92 мг на грамм, влажность хранения в работе не указана. Зелёный чай за 12 месяцев дал сумму свободных аминокислот 3,18, 3,11 и 3,15 процента при минус 20, комнатной температуре и 40 °C, то есть год хранения её почти не сдвинул; при этом сами эти три числа с собственным выводом работы о снижении аминокислот не согласуются, и теанин отдельно в ней не измерялся.
19. Теанин вызывает вкус умами через рецептор T1R1 плюс T1R3 и пропорционально усиливает умами глутамата натрия.
подтвержденомеханизм
первая работа показывает активацию клеток, экспрессирующих оба белка рецептора, и синергию с инозин-5-монофосфатом, а направленный мутагенез указывает место связывания; концентраций реферат не приводит. Вторая работа выполнена на матче и относит теанин к четырём усилителям умами наравне с янтарной кислотой, галловой кислотой и теогаллином, то есть описывает роль модулятора, а не самостоятельного стимула. Обе сверены по рефератам.
20. В прямом измерении разные концентрации теанина горечь чайного настоя не меняли.
на одном источникенаблюдение
собственный предмет работы это порог горечи теасинензина A, равный 65 микромоль на литр; отрицательный результат по теанину получен попутно. Приведённые там же пороги горечи кофеина (500 микромоль на литр) и галлата эпигаллокатехина (190) взяты работой из чужой публикации, то есть по этим двум числам она посредник. Пока это одна работа. Дополним раздел, когда появятся новые данные.
21. Зеркальная D-форма теанина в свежем листе не обнаруживается: она появляется при завяливании и накапливается дальше по обработке и хранению.
на одном источникенаблюдение
56 образцов, разделение реагентом Марфи. Доля D-формы от 5,56 до 51,80 процента получена на пяти холодно-растворимых чёрных чаях после щелочной обработки, а не на растворимых чаях как классе. Сверено по реферату. Смежная работа Экборг-Отт и др. 1997 года описывает сортовые различия по доле D-формы и рацемизацию теанина в водном растворе, но сверить её не удалось технически, и в источники она не поставлена. Пока это одна работа. Дополним раздел, когда появятся новые данные.
применяется к: Альбиносный культивар, о котором говорит утверждение 8
применяется к: Затенённое сырьё и самая плотная навеска нашей полки
применяется к: Стебельковое сырьё, к которому относится спор о стебле и листе
применяется к: Затенённое сырьё в порошке, лист уходит в настой целиком
Источники
s278 Sakato Y. (1950). Studies on the Chemical Constituents of Tea: Part III. On a New Amide Theanine. Nippon Nogeikagaku Kaishi, 23(6):262-267. DOI 10.1271/nogeikagaku1924.23.262T1
s279 Ashihara H. (2015). Occurrence, Biosynthesis and Metabolism of Theanine (gamma-Glutamyl-L-ethylamide) in Plants: A Comprehensive Review. Natural Product Communications, 10(5):803-810. DOI 10.1177/1934578X1501000525T1
s280 Lin S., Zhang Y., Zhang S., Wei Y., Han M., Deng Y., Guo J., Zhu B., Yang T., Xia E., Wan X., Lucas W.J., Zhang Z. (2024). Root-specific theanine metabolism and regulation at the single-cell level in tea plants (Camellia sinensis). eLife, 13:RP95891. DOI 10.7554/eLife.95891T1
s281 Zhang D., Wei X., Zhang J., Cui D., Zhang P., Chen S., Zou Y., Chen W., Tang D., Liu C., Bian J., Tang Q., Tan L. (2025). Variation analysis and quantitative trait loci mapping of 16 free amino acid traits in the tea plant (Camellia sinensis). BMC Plant Biology, 25:194. DOI 10.1186/s12870-024-06038-9T1
s282 Huang R., Wang Z., Wen W., Yao M., Liu H., Li F., Zhang S., Ni D., Chen L. (2024). Comprehensive dissection of variation and accumulation of free amino acids in tea accessions. Horticulture Research, 11(1):uhad263. DOI 10.1093/hr/uhad263T1
s283 Li F., Dong C., Yang T., Ma J., Zhang S., Wei C., Wan X., Zhang Z. (2019). Seasonal Theanine Accumulation and Related Gene Expression in the Roots and Leaf Buds of Tea Plants (Camellia Sinensis L.). Frontiers in Plant Science, 10:1397. DOI 10.3389/fpls.2019.01397T1
s284 Bai P., Wei K., Wang L., Zhang F., Ruan L., Li H., Wu L., Cheng H. (2019). Identification of a Novel Gene Encoding the Specialized Alanine Decarboxylase in Tea (Camellia sinensis) Plants. Molecules, 24(3):540. DOI 10.3390/molecules24030540T1
s285 Zhu B., Qiao S., Li M., Cheng H., Ma Q., Wei C., Wan X., Zhang Z. (2023). Strong biosynthesis and weak catabolism of theanine in new shoots contribute to the high theanine accumulation in Albino/etiolated tea plant (Camellia sinensis). Beverage Plant Research, 3:23. DOI 10.48130/BPR-2023-0023T1
s286 Chang M., Sun Y., Fang K., Fu M., Ma J., Gao Y., Chen Q., Liu L., Zhang Z., Wan X., Sun J. (2024). CsMYB73 negatively regulates theanine accumulation mediated by CsGGT2 and CsGGT4 in tea shoots (Camellia sinensis). Horticulture Research, 11(3):uhae012. DOI 10.1093/hr/uhae012T1
s287 Chen X., Ye K., Xu Y., Zhao Y., Zhao D. (2022). Effect of Shading on the Morphological, Physiological, and Biochemical Characteristics as Well as the Transcriptome of Matcha Green Tea. International Journal of Molecular Sciences, 23(22):14169. DOI 10.3390/ijms232214169T1
s288 Krahe J., Krahe M.A. (2022). Optimizing the Quality and Commercial Value of Gyokuro-Styled Green Tea Grown in Australia. Beverages, 8(2):22. DOI 10.3390/beverages8020022T1
s289 Zhang S., Lin S., Jin R., Zhang Y., Zhang X., Zhu B., Luo Y., Ham B.-K., Chen J., Yang T., Wan X., Zhang Z. (2025). CATIONIC AMINO ACID TRANSPORTER 1 modulates amino acid distribution between stem and leaf in new shoots: A case study of theanine distribution in tea plants (Camellia sinensis). Plant Physiology, 198(3):kiaf255. DOI 10.1093/plphys/kiaf255T1
s290 Too J.C., Kinyanjui T., Wanyoko J.K., Wachira F.N. (2015). Effect of Sunlight Exposure and Different Withering Durations on Theanine Levels in Tea (Camellia sinensis). Food and Nutrition Sciences, 6(11):1014-1021. DOI 10.4236/fns.2015.611105T1
s291 Liu Z.-W., Wu Z.-J., Li H., Wang Y.-X., Zhuang J. (2017). L-Theanine Content and Related Gene Expression: Novel Insights into Theanine Biosynthesis and Hydrolysis among Different Tea Plant (Camellia sinensis L.) Tissues and Cultivars. Frontiers in Plant Science, 8:498. DOI 10.3389/fpls.2017.00498T1
s292 Li M.-Y., Liu H.-Y., Wu D.-T., Kenaan A., Geng F., Li H.-B., Gunaratne A., Li H., Gan R.-Y. (2022). L-Theanine: A Unique Functional Amino Acid in Tea (Camellia sinensis L.) With Multiple Health Benefits and Food Applications. Frontiers in Nutrition, 9:853846. DOI 10.3389/fnut.2022.853846T1
s293 Cheng H., Wu W., Liu X., Wang Y., Xu P. (2022). Transcription factor CsWRKY40 regulates L-theanine hydrolysis by activating the CsPDX2.1 promoter in tea leaves during withering. Horticulture Research, 9:uhac025. DOI 10.1093/hr/uhac025T1
s294 Sari F., Velioglu Y.S. (2013). Changes in theanine and caffeine contents of black tea with different rolling methods and processing stages. European Food Research and Technology, 237(2):229-236. DOI 10.1007/s00217-013-1984-zT1
s295 Li Q., Chai S., Li Y., Huang J., Luo Y., Xiao L., Liu Z. (2018). Biochemical Components Associated With Microbial Community Shift During the Pile-Fermentation of Primary Dark Tea. Frontiers in Microbiology, 9:1509. DOI 10.3389/fmicb.2018.01509T1
s296 Cui J., Wu B., Zhou J. (2024). Changes in amino acids, catechins and alkaloids during the storage of oolong tea and their relationship with antibacterial effect. Scientific Reports, 14:10424. DOI 10.1038/s41598-024-60951-5T1
s297 Narukawa M., Toda Y., Nakagita T., Hayashi Y., Misaka T. (2014). L-Theanine elicits umami taste via the T1R1 + T1R3 umami taste receptor. Amino Acids, 46(6):1583-1587. DOI 10.1007/s00726-014-1713-3T1
s298 Kaneko S., Kumazawa K., Masuda H., Henze A., Hofmann T. (2006). Molecular and sensory studies on the umami taste of Japanese green tea. Journal of Agricultural and Food Chemistry, 54(7):2688-2694. DOI 10.1021/jf0525232T1
s299 Zhang J., Cui H., Feng Z., Wang W., Zhao Y., Deng Y., Jiang H., Yin J., Engelhardt U.H. (2023). Bitterness quantification and simulated taste mechanism of theasinensin A from tea. Frontiers in Nutrition, 10:1138023. DOI 10.3389/fnut.2023.1138023T1
s300 Horanni R., Engelhardt U.H. (2015). Enantiomeric analysis of theanine in different teas (Camellia sinensis) using Marfey's reagent. European Food Research and Technology, 240(1):61-70. DOI 10.1007/s00217-014-2307-8T1
s301 Zhao X., Yu P., Zhong N., Huang H., Zheng H. (2024). Impact of Storage Temperature on Green Tea Quality: Insights from Sensory Analysis and Chemical Composition. Beverages, 10(2):35. DOI 10.3390/beverages10020035T1