ГАБА-чай это не сорт, а операция над обычным листом
Чтение 1 минута. Ниже кнопка на научную часть.
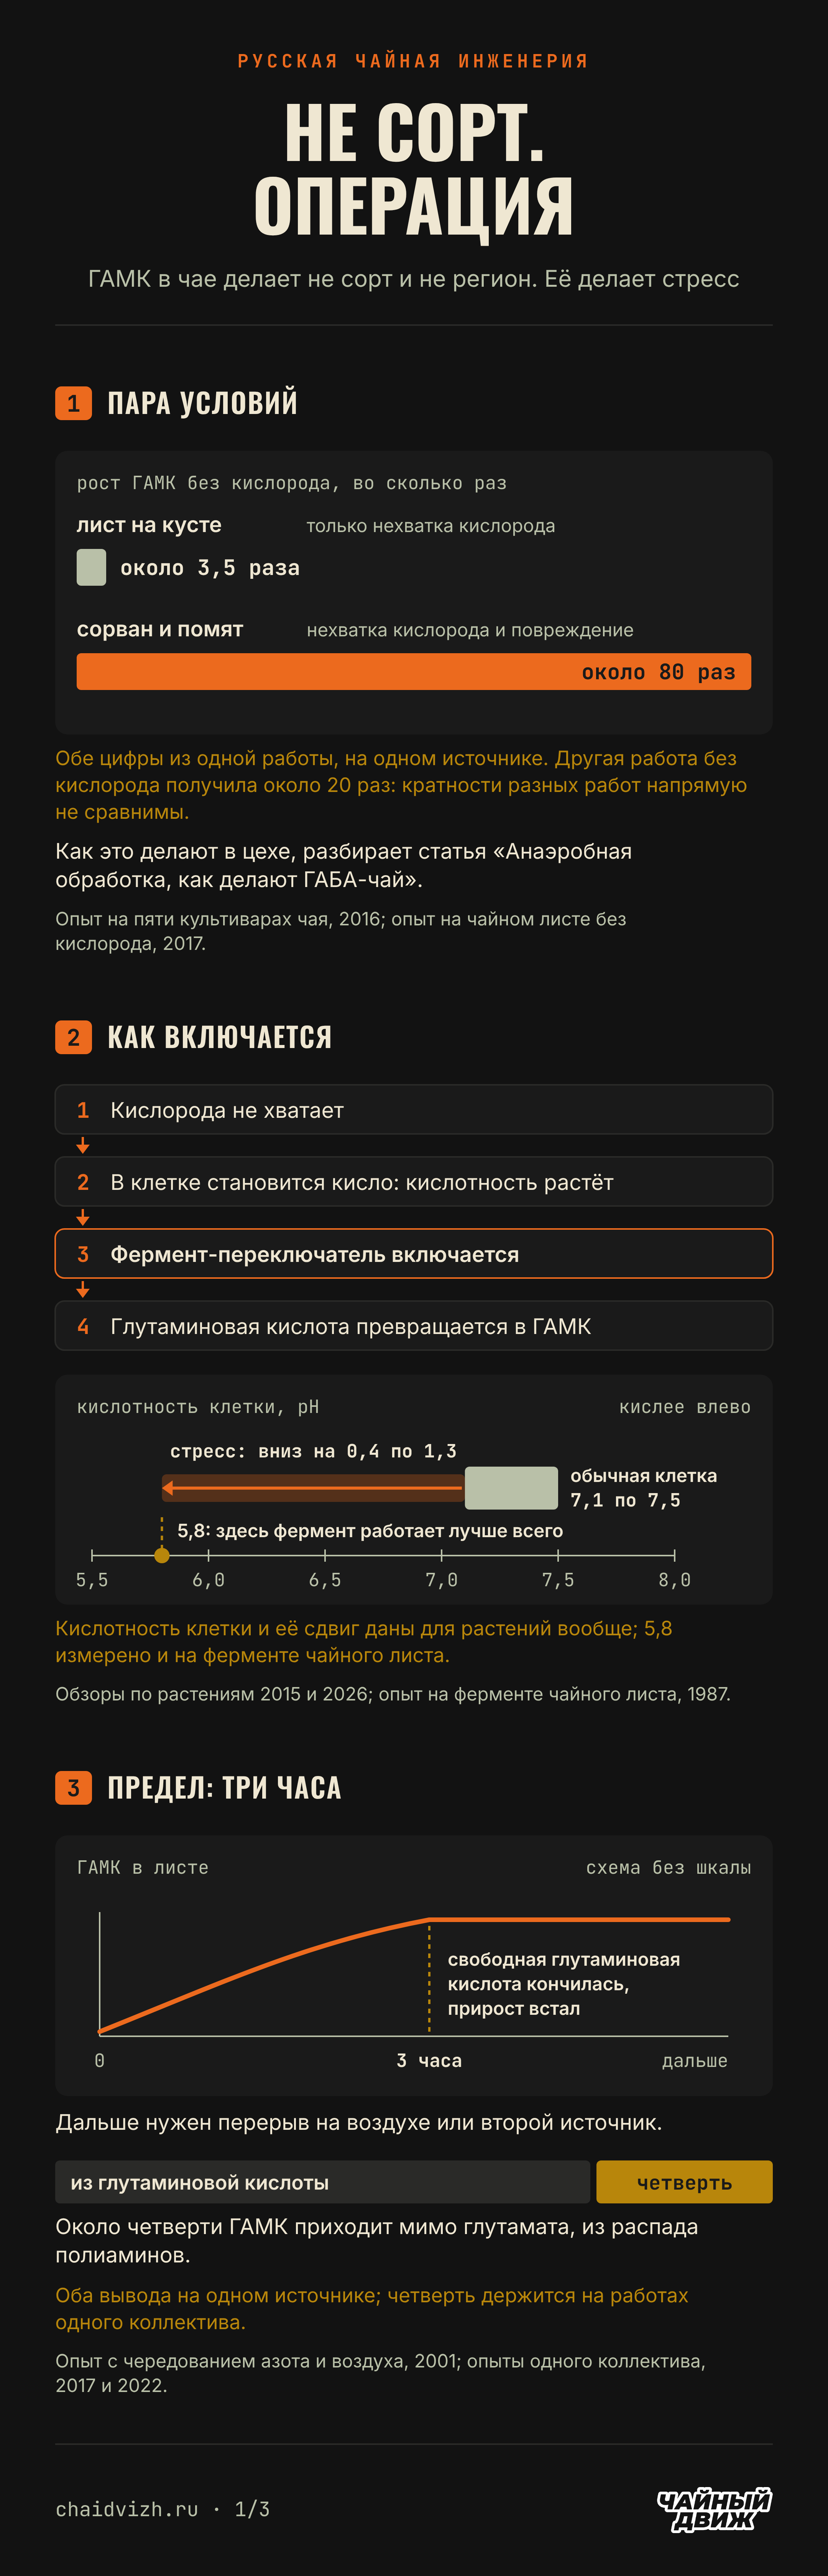
ГАМК в чае делает не сорт и не регион. Её делает стресс: лист начинает копить её тогда, когда ему не хватает кислорода.
В обычном чайном листе ГАМК мало. Она появляется, когда клетке становится кисло: фермент, который делает ГАМК из глутаминовой кислоты, включается именно закислением, а кислородное голодание это закисление и даёт.
Одного голодания при этом мало. У листа, оставшегося на кусте, прирост выходит в три с половиной раза, у сорванного и помятого в восемьдесят. Нужна пара: нехватка кислорода и механическое повреждение.
Дальше всё упирается в сырьё. Свободная глутаминовая кислота кончается за первые три часа, и рост останавливается. Ещё около четверти ГАМК приходит вторым путём, из распада полиаминов. Поэтому ГАБА-чай это не другое растение и не особый сорт, а операция, наложенная поверх обычного листа.
Что с этим делать
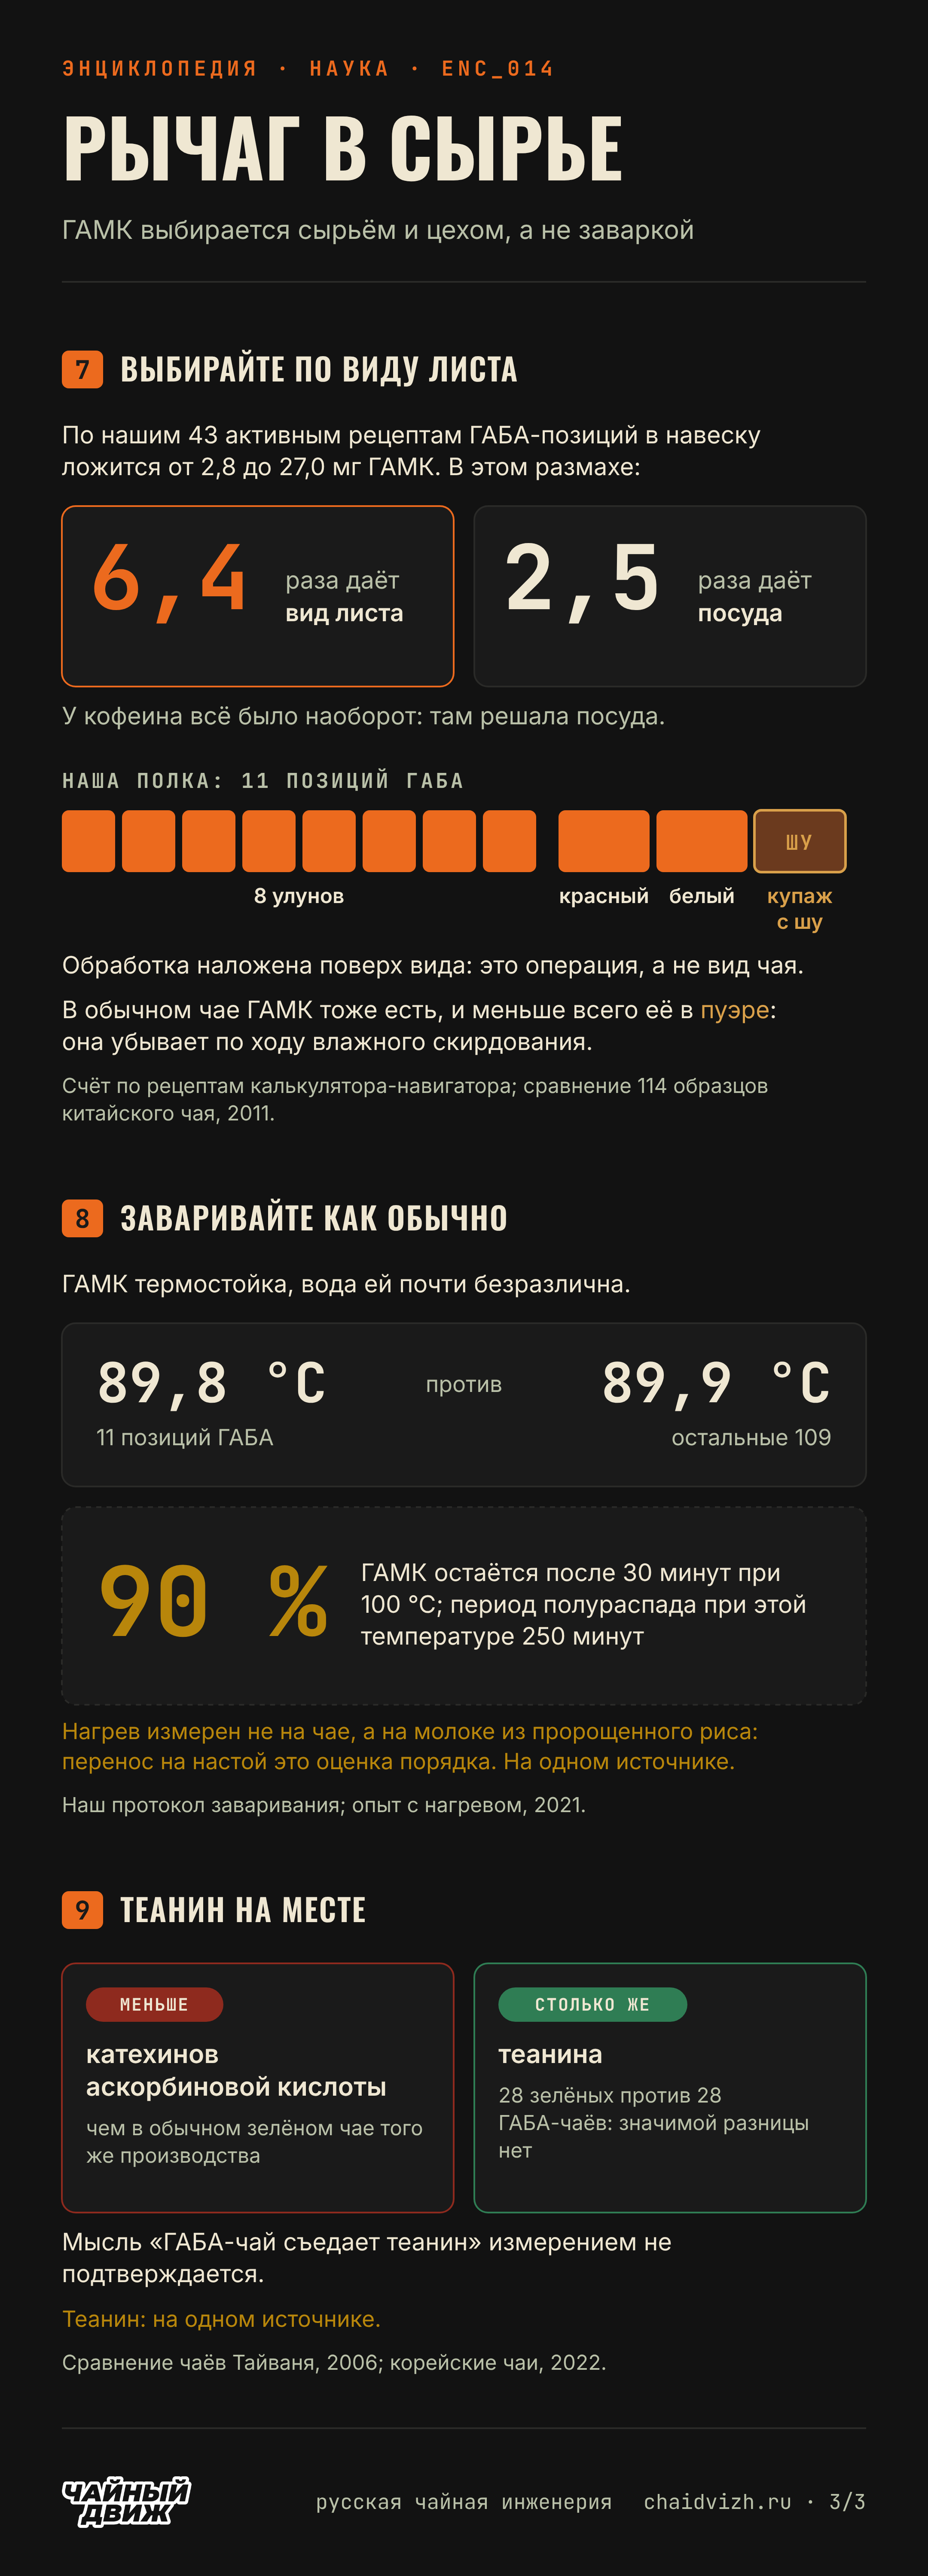
Выбирайте позицию по виду листа, а не по посуде: разброс по видам шире.
Заваривайте их как обычный улун или красный: ГАМК термостойка, вода ей почти безразлична.
Не ищите в ГАБА-чае убыли теанина: его там столько же, сколько в обычном.
6,4 против 2,5Во столько раз вид листа и посуда меняют количество ГАМК в навеске по нашим рецептам. У кофеина всё было наоборот: там решала посуда.
Чего мы не знаем
Сколько ГАМК в обычном чае в миллиграммах, мы не приводим: эти числа лежат только в закрытых таблицах. И никто не измерял, сколько её теряется при хранении готового чая.
ГАМК это гамма-аминомасляная кислота, непротеиногенная аминокислота, которая есть у всех растений, и чайный куст не исключение. В обычном листе её мало. Копится она тогда, когда клетке плохо: при нехватке кислорода лист начинает делать её из глутаминовой кислоты. ГАБА-чай это обычный лист, которому такой стресс устроили намеренно.
Разбор
Что это за молекула
Систематическое имя 4-аминобутановая кислота, формула C4H9NO2, молярная масса 103,12. В воде растворяется очень хорошо, порядка 1300 миллиграммов на миллилитр. Аминогруппа стоит не у второго атома углерода, как у аминокислот белка, а у четвёртого, и в белок такая молекула не встраивается. Отсюда и определение: непротеиногенная.
Это не редкость и не изобретение чайного куста. ГАМК находят у всех растений, и в обычном состоянии её уровень низкий. Особенность в другом: он резко растёт при стрессе.
Сборка идёт в обход цикла Кребса
Путь называется ГАМК-шунтом. Глутаминовая кислота теряет углекислый газ и превращается в ГАМК, дальше ГАМК отдаёт аминогруппу и становится янтарным полуальдегидом, а тот окисляется до янтарной кислоты и возвращается в цикл Кребса. То есть шунт срезает два шага основного цикла и проходит их через ГАМК.
Первый фермент этой цепочки, глутаматдекарбоксилаза, и есть переключатель. Он работает лучше всего при pH около 5,8, а при обычном для клетки 7,0 по 7,5 без кальция и кальмодулина почти не работает. Цитоплазма растения держит pH от 7,1 до 7,5, и стресс сдвигает его вниз на 0,4 по 1,3 единицы. Этого сдвига хватает, чтобы фермент включился. Второй способ включения это кальций-кальмодулиновый домен на конце белковой цепи: он поднимает активность при обычном pH в 4 по 35 раз, смотря по ферменту.
Почему нужен именно сорванный лист
У чайного куста три гена глутаматдекарбоксилазы, и они не равны. Первый несёт рабочий участок связывания кальмодулина, второй на кальмодулин не отвечает и берёт своё уровнем матричной РНК, третий глутамат в ГАМК не превращает вовсе.
Отсюда и практика цеха. Одного кислородного голодания мало: у неповреждённого листа на растении прирост около 3,5 раза, у сорванного около 80. Нужна именно пара, нехватка кислорода и механическое повреждение. Как это делают в цехе, разбирает отдельная статья про анаэробную обработку.
Второй источник и предел
Глутаминовая кислота не единственное сырьё. При кислородном голодании работает и распад полиаминов: если полностью погасить фермент этого пути, ГАМК падает лишь примерно на четверть. То есть около четверти вещества приходит мимо глутамата. Отдельная работа того же коллектива (Чжан и др., 2022) показала это с другой стороны: опрыскивание путресцином поднимает ГАМК, а уровень глутамата при этом не меняется.
Предел же задаёт именно глутамат. Свободный пул исчерпывается за первые три часа кислородного голодания, и прирост на этом останавливается. Дальше нужен либо перерыв на воздухе, либо второй источник.
Ещё одна деталь про распределение: ГАМК больше в стебле побега, чем в листовой пластинке. И часть её в почке приходит не из местной сборки, а переносом из зрелых листьев специальным белком-переносчиком.
Откуда взялась планка 150
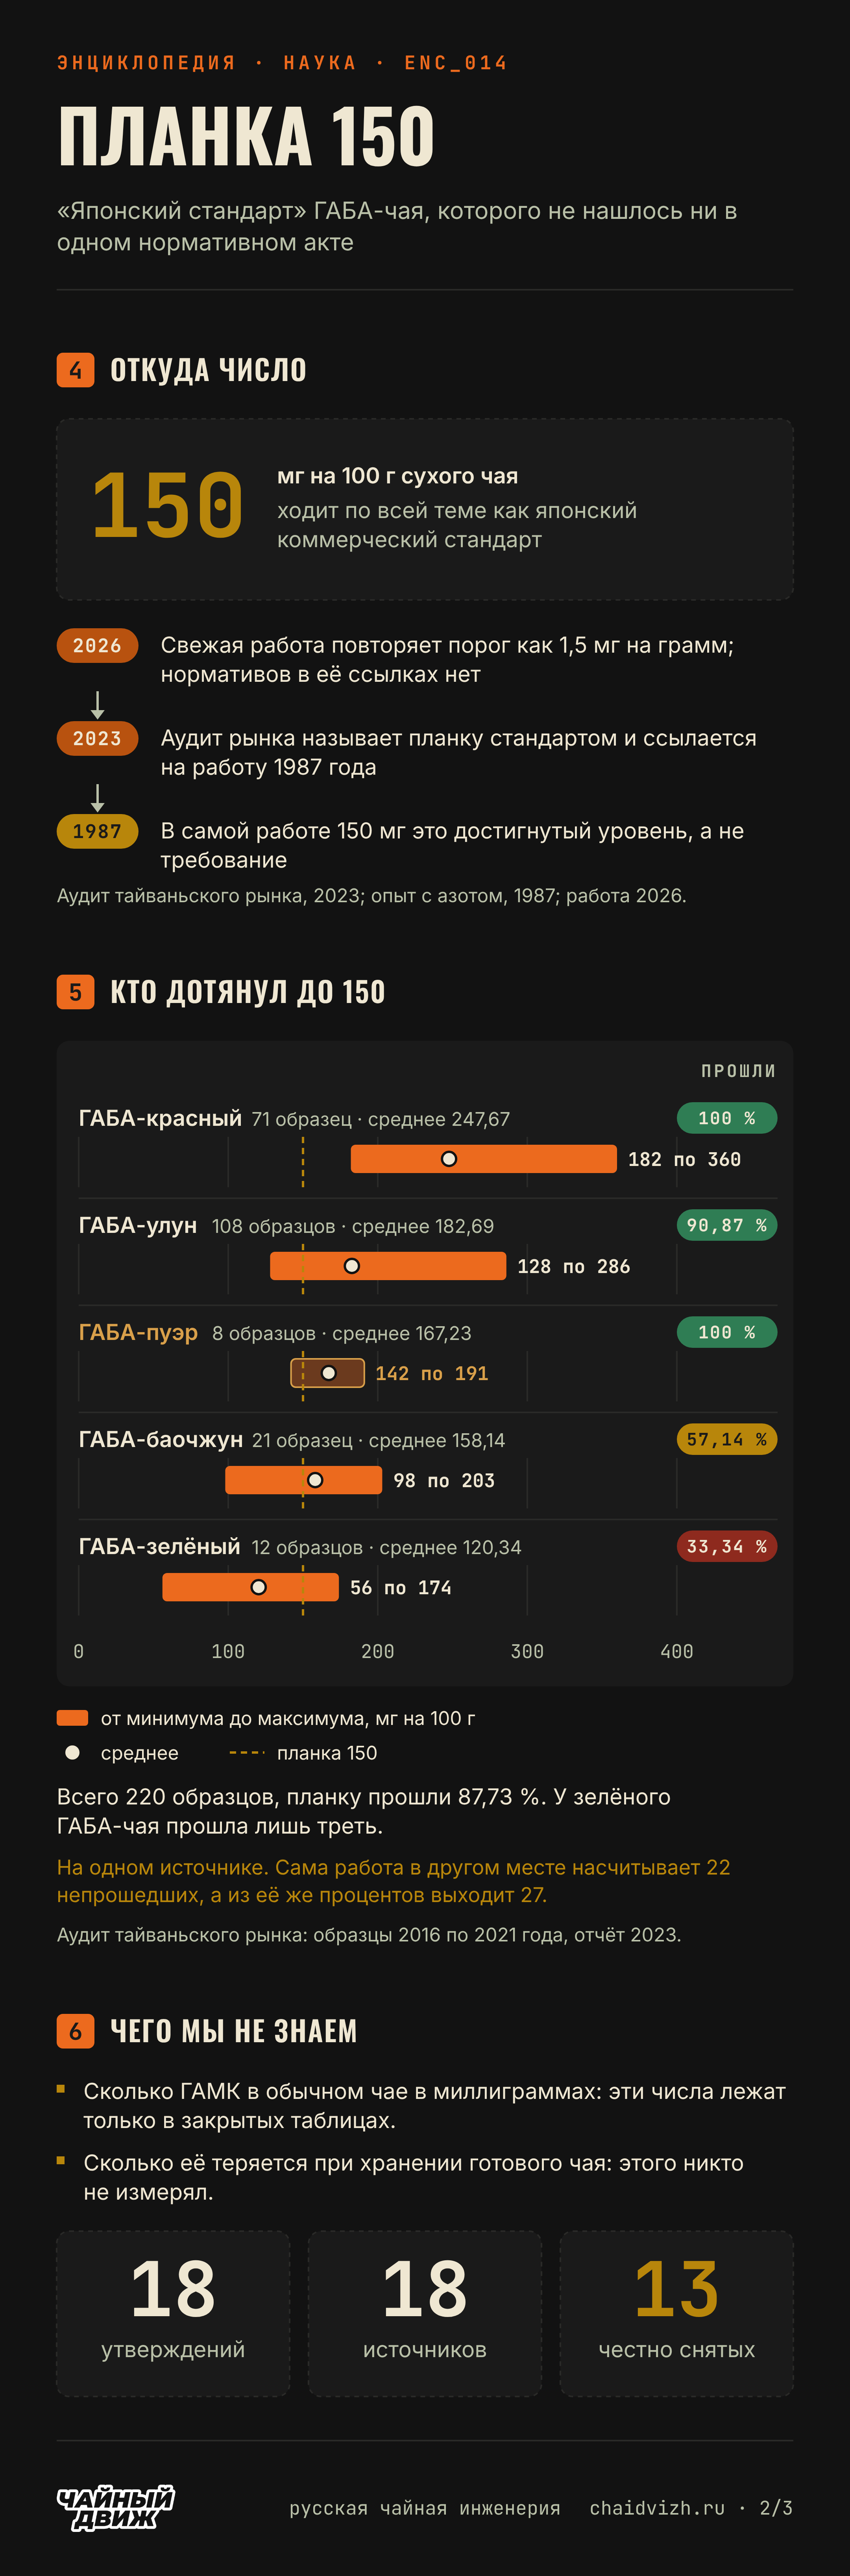
Число «не менее 150 миллиграммов на 100 граммов сухого чая» ходит по всей теме как японский коммерческий стандарт. Его происхождение прослеживается: аудит тайваньского рынка называет эту величину стандартом и ссылается при этом на исследовательскую работу 1987 года, а не на нормативный акт. В самой работе 1987 года 150 миллиграммов это достигнутый уровень: лист, выдержанный шесть часов в азоте, дал больше этой величины. Свежая работа 2026 года повторяет порог как «не менее 1,5 мг на грамм» и ссылается на три публикации, среди которых нет ни одного нормативного документа.
Как это выглядит на рынке, измерено: из 220 тайваньских образцов планку прошли 87,73 процента. По видам разброс велик, и у зелёного ГАБА-чая прошла лишь треть.
Чем за это платят и чем не платят
Анаэробная обработка не бесплатна. В ГАБА-чае катехинов и аскорбиновой кислоты меньше, чем в обычном зелёном чае того же производства.
А вот теанин на образование ГАМК не расходуется: в парном сравнении 28 зелёных и 28 ГАБА-чаёв теанин между двумя типами значимо не различается. Ходовая мысль «ГАБА-чай съедает теанин» измерением не подтверждается.
Сколько её и что с ней делает нагрев
В готовом ГАБА-чае величины порядка двух миллиграммов на грамм. ГАМК при этом термически устойчива: за полчаса при 100 °C теряется около десятой части, а период полураспада при той же температуре идёт часами.
В обычном чае ГАМК тоже есть, и меньше всего её в пуэре: она убывает по ходу влажного скирдования. На нашей полке одиннадцать позиций ГАБА, и это восемь улунов, один красный, один белый и один купаж с шу. То есть анаэробная обработка это не вид чая, а операция, наложенная поверх вида.
Числовая таблица
ГАМК в товарном ГАБА-чае: 220 образцов одного аудита
Вид чая
Диапазон, мг/100 г
Среднее
Образцов
Прошли планку 150
ГАБА-красный
182 по 360
247,67
71
100 %
ГАБА-улун
128 по 286
182,69
108
90,87 %
ГАБА-пуэр
142 по 191
167,23
8
100 %
ГАБА-баочжун
98 по 203
158,14
21
57,14 %
ГАБА-зелёный
56 по 174
120,34
12
33,34 %
Источник s12. Само различие содержания по видам листа разобрано утверждением соседней статьи про сон и здесь не повторяется: эта таблица нужна для счёта в практическом блоке.
Что делают с ГАМК стресс и нагрев
Что измерено
Значение
Источник
Прирост у сорванного листа при кислородном голодании
около 80 раз
s6
Прирост у неповреждённого листа на растении
около 3,5 раза
s6
Прирост при аноксии, независимое измерение
около 20 раз
s7
Пурпурнолистный чай, 8 часов обработки
с 0,02 до 1,72 мг/г
s10
Вьетнамский ГАБА-чай, 40 °C и 9 часов
202,77 мг/100 г
s11
Свободный глутамат исчерпывается
за 3 часа
s8
Остаток ГАМК после 30 минут при 100 °C
90 %
s17
Период полураспада ГАМК при 100 °C
250 минут
s17
Что это значит на практике
Наглядно
Не сорт, а операция: пара условий, переключатель кислотности и предел в три часа.Планка 150: откуда взялось число и кто из видов до него дотянул.Рычаг в сырье: три действия верхнего слоя и их основания.
Исследования
1. ГАМК это 4-аминобутановая кислота, непротеиногенная аминокислота с формулой C4H9NO2 и молярной массой 103,12, очень хорошо растворимая в воде.
подтвержденомеханизм
справочная база даёт растворимость 1300 мг на миллилитр и температуру плавления 203 °C, но оба значения приходят в неё из базы метаболома человека, то есть база здесь посредник, а не измерение; температура, при которой измерена растворимость, не указана. Обзор по растениям независимо называет ГАМК непротеиногенной аминокислотой, но химических констант не приводит.
2. ГАМК есть у всех растений, в обычном состоянии её уровень низкий, и он резко растёт при стрессе.
подтвержденонаблюдение
оба источника это обзоры по растениям вообще, а не измерения на чайном кусте. Первый разбирает солевой стресс, второй метаболизм и сигнальную роль. Числовой границы «низкого уровня» ни один не задаёт.
3. Сборка ГАМК идёт по пути, который срезает два шага цикла Кребса: глутаминовая кислота теряет углекислый газ и даёт ГАМК, та превращается в янтарный полуальдегид, а он окисляется до янтарной кислоты.
подтвержденомеханизм
оба источника описывают путь для растений вообще. Второй прямо указывает и обходной путь, где ГАМК получается из распада полиаминов, минуя глутамат. Номеров классификации ферментов ни один из двух источников не даёт, и здесь они не приводятся.
4. Глутаматдекарбоксилазу включает закисление цитоплазмы: оптимум её работы лежит около pH 5,8, а при обычных для клетки 7,0 по 7,5 без кальция и кальмодулина активности почти нет.
подтвержденомеханизм
величина 5,8 получена независимо дважды: обзор по растениям вообще даёт её как оптимум для растительных ферментов этого класса, а работа 1987 года измерила её прямо на ферменте чайного листа, очищенном в 52,4 раза, с пиридоксальфосфатом как кофактором и только L-глутаминовой кислотой как субстратом. Там же изотопной меткой показано, что азот ГАМК приходит из глутаминовой кислоты, и что активность фермента при кислородном голодании не растёт. Кратности активации кальмодулином (в 35, 13 и 4 раза) измерены на арабидопсисе и сое, не на чае. Цитоплазменный pH 7,1 по 7,5 и его сдвиг на 0,4 по 1,3 единицы даны для растений вообще, прямого измерения на чайном листе нет. Вторая работа сверена по реферату.
5. У чайного куста три гена глутаматдекарбоксилазы, и только один несёт рабочий участок связывания кальмодулина, а третий глутамат в ГАМК не превращает вовсе.
на одном источникемеханизм
якорные остатки связывания названы поимённо, это два лизина в положениях 496 и 497. Рекомбинантные первый и второй ферменты превращали глутамат в ГАМК, третий активности не показал. Работа выполнена на пяти культиварах, абсолютных величин ГАМК в миллиграммах на грамм не приводит, данные даны графиками. Пока это одна работа. Дополним раздел, когда появятся новые данные.
6. Для накопления ГАМК нужна пара условий, кислородное голодание и механическое повреждение: у сорванного листа прирост около 80 раз, у неповреждённого на растении около 3,5.
на одном источникенаблюдение
условия обработки 25 °C, влажность 70 процентов, темнота, четыре или шесть часов. Вывод авторов дословно говорит о том, что для резкого накопления существенна именно комбинация повреждения и аноксии. Кратности зависят от исходного уровня в контроле и с кратностями других работ прямо не сопоставимы. Пока это одна работа. Дополним раздел, когда появятся новые данные.
7. Около четверти ГАМК чайного листа при кислородном голодании образуется не из глутамата, а из распада полиаминов.
на одном источникенаблюдение
аминогуанидин полностью подавил диаминоксидазу, а ГАМК при этом снизилась примерно на 25 процентов; там же аноксия дала около 20-кратного прироста относительно свежего листа. Работа того же коллектива (Чжан и др., 2022, Foods 11(9):1356) подтверждает вывод с другой стороны: опрыскивание путресцином значимо поднимает ГАМК, а уровень глутамата не меняется. Это не независимое подтверждение, а вторая работа той же группы, и величина «одна четверть» держится на одном коллективе. Пока это одна работа. Дополним раздел, когда появятся новые данные.
8. Накопление ГАМК ограничено пулом свободной глутаминовой кислоты, который исчерпывается за первые три часа кислородного голодания.
на одном источникемеханизм
после исчерпания прирост ГАМК останавливается, и авторы предлагают обходить это чередованием бескислородных и воздушных отрезков. Абсолютных величин в миллиграммах на 100 граммов из открытой части работы получить не удалось, сверено по реферату. Независимого повторения этой схемы на чайном листе не найдено. Пока это одна работа. Дополним раздел, когда появятся новые данные.
9. ГАМК в чайном листе поднимается не только кислородным голоданием, но и другими стрессами.
подтвержденонаблюдение
при засухе содержание ГАМК в корне значимо падает, в листе растёт более чем вдвое, а в стебле не меняется; измерено на чайном растении, тогда как функция генов проверялась на трансгенном арабидопсисе. Вторая работа заявляет множественные стрессы в заголовке, но количественно разбирает только кислородное голодание и механическое повреждение.
10. Анаэробная обработка поднимает ГАМК в листе до величин порядка двух миллиграммов на грамм.
подтвержденонаблюдение
на пурпурнолистном чае восемь часов обработки дали рост с 0,02 до 1,72 мг на грамм (p менее 0,05), при этом антоцианы и метилированный галлат эпигаллокатехина практически не изменились, а кверцетин и мирицетин выросли; культивар и стандарт сбора в открытой части не названы, сверено по реферату. На вьетнамском сырье в азоте оптимум пришёлся на 40 °C и девять часов и дал 202,77 мг на 100 граммов, то есть 2,03 мг на грамм; там же выдержки 12 и 15 часов результата не улучшили. Сырьё и схемы у работ разные, совпадение здесь по порядку величины.
11. Величина «не менее 150 миллиграммов на 100 граммов», которую называют японским стандартом ГАБА-чая, восходит не к нормативному документу, а к исследовательской работе 1987 года.
подтвержденонаблюдение
аудит тайваньского рынка формулирует планку как японский стандарт коммерциализации и ставит в этом месте ссылку на статью 1987 года в журнале японского общества агрохимии, а не на регламент. В самой работе 1987 года 150 миллиграммов это достигнутый уровень: зелёный чай из листа, выдержанного шесть часов в азоте, дал выше этой величины; сверено по реферату. Работа 2026 года повторяет порог в виде «не менее 1,5 мг на грамм» и ссылается на три публикации, из которых одна вообще не о чае, вторая об аромате, третья о ферментах, то есть первоисточника порога не называет. Нормативного акта, задающего эту величину, найти не удалось ни в японских, ни в тайваньских источниках.
12. Часть товарного ГАБА-чая планке не соответствует, и сильнее всего расхождение у зелёного.
на одном источникенаблюдение
220 коммерческих образцов тайваньского производства, собранных с 2016 по 2021 год, извлечение водой 75 °C полтора часа, дериватизация фенилизотиоцианатом, ВЭЖХ с детекцией при 254 нм. Планку прошли 87,73 процента, по видам от 100 процентов у красного и пуэра до 57,14 у баочжуна и 33,34 у зелёного. Сама работа при этом расходится с собой в счёте: в другом месте она называет 22 непрошедших образца из 220, что соответствует доле 90 процентов, тогда как из 87,73 процента и из разбивки по видам следует 27 непрошедших. Пока это одна работа. Дополним раздел, когда появятся новые данные.
13. Теанин на образование ГАМК не расходуется: между ГАБА-чаем и обычным зелёным чаем его содержание значимо не различается.
на одном источникенаблюдение
парное сравнение 28 образцов зелёного и 28 образцов ГАБА-чая одного региона по одному протоколу. Вместе с теанином не различались триптофан, валин, треонин и метионин, а также влажность, сумма свободных аминокислот, сырой жир, общий азот, свободные жирные кислоты и восстанавливающие сахара. Работа сравнивает готовые чаи, а не одно сырьё, разведённое по обработке, и судьбу теанина по ходу самой обработки не прослеживает. Сверено по реферату. Пока это одна работа. Дополним раздел, когда появятся новые данные.
14. ГАМК есть и в обычном чае, а меньше всего её в пуэре, где она убывает по ходу влажного скирдования.
подтвержденонаблюдение
первая работа это 114 образцов китайского чая, из них 62 пуэра, плюс 16 проб по стадиям двух промышленных ферментаций; ГАМК в пуэре значимо ниже прочих типов и снижается по ходу ферментации, а белый чай значимо выше остальных, все различия при p менее 0,05. Абсолютных величин в миллиграммах на 100 граммов реферат не приводит, и они здесь не воспроизводятся. Вторая работа независимым методом с дериватизацией дабсилхлоридом сообщает, что содержание ГАМК в обычных чаях в целом ниже, чем в ГАБА-чае. Обе сверены по рефератам.
15. ГАМК термически устойчива: за полчаса при 100 °C теряется около десятой части.
на одном источникемеханизм
остаток после 30 минут нагрева составил 94 процента при 80 °C, 92 при 90, 90 при 100 и 68 при 121 °C; период полураспада от 438 минут при 80 °C до 53 минут при 121 °C, при 100 °C это 250 минут; распад описывается кинетикой второго порядка. Измерено не на чае, а на молоке из пророщенного риса, поэтому перенос на чайный настой это оценка порядка. Энергия активации распада в реферате и таблице работы дана как 59,62 кДж на моль, а в тексте той же работы стоит 56,92, и это расхождение внутри публикации. Пока это одна работа. Дополним раздел, когда появятся новые данные.
16. Стебель побега накапливает ГАМК сильнее, чем листовая пластинка.
на одном источникенаблюдение
наблюдение сделано попутно в работе о чередовании бескислородных и воздушных отрезков, абсолютных величин по стеблю и листу отдельно из открытой части получить не удалось, сверено по реферату. Отдельная работа о засухе показывает, что при этом стрессе ГАМК в стебле не меняется вовсе, то есть градиент задаётся не одним механизмом. Пока это одна работа. Дополним раздел, когда появятся новые данные.
17. Часть ГАМК в почке и молодом листе приходит не из местной сборки, а переносом из зрелых листьев.
на одном источникемеханизм
описан двунаправленный переносчик аминокислот, который ведёт поток от зрелых листьев к молодым побегам и тем поднимает там ГАМК. Работа связывает этот перенос ещё и с обменом флавоноидов. Печатный выпуск вышел в январе 2026 года, хотя онлайн работа появилась в октябре 2025, и по онлайн-дате её нередко цитируют как работу 2025 года. Пока это одна работа. Дополним раздел, когда появятся новые данные.
18. Анаэробная обработка идёт не бесплатно: в ГАБА-чае катехинов и аскорбиновой кислоты меньше, чем в обычном зелёном чае того же производства.
подтвержденонаблюдение
в первой работе у обычного зелёного чая выше сумма катехинов и аскорбиновая кислота при p менее 0,05, а в ГАБА-чае ниже эпикатехин и галлат эпигаллокатехина. Вторая работа на корейском сырье показывает снижение суммы полифенолов и флавоноидов у ГАБА-зелёного и ГАБА-красного, но не по катехинам поимённо, и отмечает, что антиоксидантная способность при этом не упала. Обе сверены по рефератам. У второй работы порядок авторов в записи издателя и в реферативной базе различается, и здесь принят порядок издателя.
применяется к: Красный чай анаэробной обработки, вид с самым высоким измеренным содержанием
применяется к: Единственная наша позиция, где обработка соседствует с пуэром
Источники
s302 National Center for Biotechnology Information PubChem Compound Summary for CID 119, gamma-Aminobutyric acid, разделы Names and Identifiers и Chemical and Physical Properties. National Library of Medicine, CID 119. источникT2
s303 Flaherty E.J., Shelp B.J. (2026). Interaction of 4-Aminobutyrate (GABA) with the Tricarboxylic Acid Cycle in Plants Under Salinity Stress. Plants, 15(1):123. DOI 10.3390/plants15010123T1
s304 Michaeli S., Fromm H. (2015). Closing the Loop on the GABA Shunt in Plants: Are GABA Metabolism and Signaling Entwined?. Frontiers in Plant Science, 6:419. DOI 10.3389/fpls.2015.00419T1
s305 Tsushida T., Murai T. (1987). Conversion of Glutamic Acid to gamma-Aminobutyric Acid in Tea Leaves under Anaerobic Conditions. Agricultural and Biological Chemistry, 51(11):2865-2871. DOI 10.1271/bbb1961.51.2865T1
s306 Tsushida T., Murai T., Omori M., Okamoto J. (1987). Production of a New Type Tea Containing a High Level of gamma-Aminobutyric Acid. Nippon Nogeikagaku Kaishi, 61(7):817-822. DOI 10.1271/nogeikagaku1924.61.817T1
s307 Mei X., Chen Y., Zhang L., Fu X., Wei Q., Grierson D., Zhou Y., Huang Y., Dong F., Yang Z. (2016). Dual mechanisms regulating glutamate decarboxylases and accumulation of gamma-aminobutyric acid in tea (Camellia sinensis) leaves exposed to multiple stresses. Scientific Reports, 6:23685. DOI 10.1038/srep23685T1
s308 Liao J., Wu X., Xing Z., Li Q., Duan Y., Fang W., Zhu X. (2017). gamma-Aminobutyric Acid (GABA) Accumulation in Tea (Camellia sinensis L.) through the GABA Shunt and Polyamine Degradation Pathways under Anoxia. Journal of Agricultural and Food Chemistry, 65(14):3013-3018. DOI 10.1021/acs.jafc.7b00304T1
s309 Sawai Y., Yamaguchi Y., Miyama D., Yoshitomi H. (2001). Cycling treatment of anaerobic and aerobic incubation increases the content of gamma-aminobutyric acid in tea shoots. Amino Acids, 20(3):331-334. DOI 10.1007/s007260170049T1
s310 Cao Y., Chen Y., Cheng N., Zhang K., Duan Y., Fang S., Shen Q., Yang X., Fang W., Zhu X. (2024). CsCuAO1 Associated with CsAMADH1 Confers Drought Tolerance by Modulating GABA Levels in Tea Plants. International Journal of Molecular Sciences, 25(2):992. DOI 10.3390/ijms25020992T1
s311 Yang G., Zhu Y., Shi J., Peng Q., Lin Z., Lv H. (2024). Effects of anaerobic treatment on the non-volatile components and angiotensin-converting enzyme (ACE) inhibitory activity of purple-colored leaf tea. Food Chemistry: X, 23:101649. DOI 10.1016/j.fochx.2024.101649T1
s312 Nguyen Q.S., Nguyen C.B., Le T.L., Ho S.V., Nguyen T.D.H., Vo V.Q.B., Nguyen V.T. (2018). Effects of anaerobic fermentation in a nitrogen atmosphere on bioactive compound content in Vietnamese GABA tea. Vietnam Journal of Science, Technology and Engineering, 60(3):37-41. DOI 10.31276/VJSTE.60(3).37T1
s313 Wu M.-C., Liu S.-L., Liou B.-K., Chen C.-Y., Chen Y.-S. (2023). Investigation on the Quality of Commercially Available GABA Tea in Taiwan. Standards, 3(3):297-315. DOI 10.3390/standards3030022T1
s314 Feng L., Liu P., He Y., Wang S., Luo R., Gui A., Xue J., Gao S., Zheng P. (2026). Amino acid transporter CsBAT links GABA accumulation to flavonoid metabolism in Camellia sinensis. Horticulture Research, 13(1):uhaf261. DOI 10.1093/hr/uhaf261T1
s315 Wang H.F., Tsai Y.S., Lin M.L., Ou A.S. (2006). Comparison of bioactive components in GABA tea and green tea produced in Taiwan. Food Chemistry, 96(4):648-653. DOI 10.1016/j.foodchem.2005.02.046T1
s316 Zhao M., Ma Y., Wei Z., Yuan W., Li Y., Zhang C., Xue X., Zhou H. (2011). Determination and Comparison of gamma-Aminobutyric Acid (GABA) Content in Pu-erh and Other Types of Chinese Tea. Journal of Agricultural and Food Chemistry, 59(8):3641-3648. DOI 10.1021/jf104601vT1
s317 Syu K.-Y., Lin C.-L., Huang H.-C., Lin J.-K. (2008). Determination of Theanine, GABA, and Other Amino Acids in Green, Oolong, Black, and Pu-erh Teas with Dabsylation and High-Performance Liquid Chromatography. Journal of Agricultural and Food Chemistry, 56(17):7637-7643. DOI 10.1021/jf801795mT1
s318 Jirasatid S., Nopharatana M. (2021). Thermal Kinetics of Gamma-Aminobutyric Acid and Antioxidant Activity in Germinated Red Jasmine Rice Milk using Arrhenius, Eyring-Polanyi and Ball Models. Current Research in Nutrition and Food Science Journal, 9(2):700-711. DOI 10.12944/CRNFSJ.9.2.33T1
s319 Choi S.H., Kim I.D., Dhungana S.K., Shin D.H. (2022). Comparison of quality and bioactive components of Korean green, white, and black teas and their associated GABA teas. Korean Journal of Food Science and Technology, 54(2):228-234. DOI 10.9721/KJFST.2022.54.2.228T1