Катехин это не вещество, а восемь молекул с двумя отличиями
Чтение 1 минута. Ниже кнопка на научную часть.
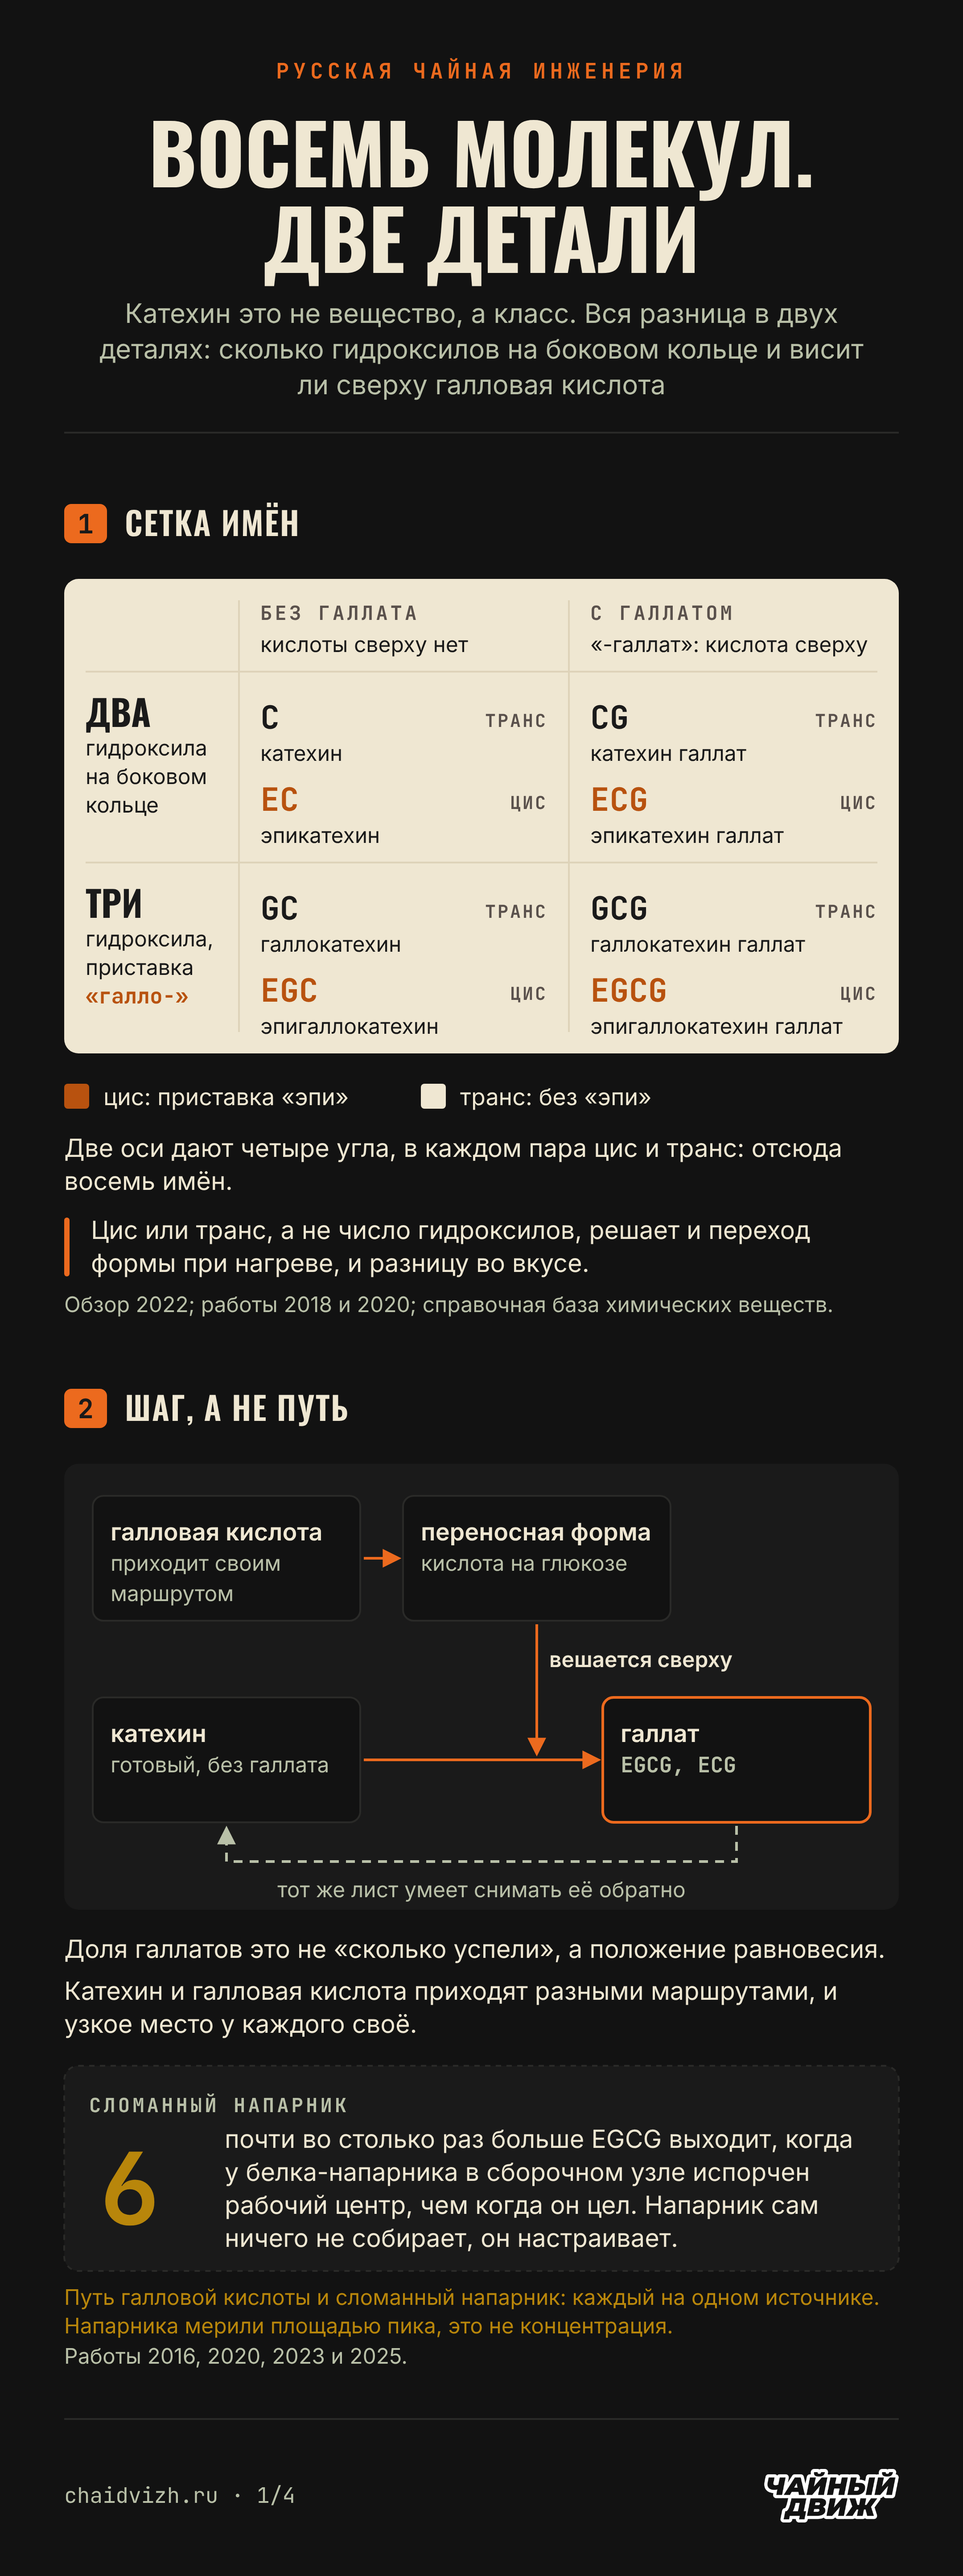
Катехин это не вещество. Это класс из восьми молекул, и вся разница между ними сидит в двух деталях: сколько гидроксилов на боковом кольце и висит ли сверху остаток галловой кислоты.
Две эти детали и есть вся номенклатура. Приставка «галло-» это третий гидроксил, окончание «-галлат» это пришитая сверху молекула галловой кислоты. Два признака, четыре комбинации, у каждой пара цис и транс.
Главное же в том, что галлат не отдельный сорт катехина. Куст сначала делает обычный катехин, а потом отдельным шагом вешает на него галловую кислоту. И этот шаг обратим: тот же лист умеет её и снимать.
Сама галловая кислота приходит вообще с другой стороны, из шикиматного пути, а не оттуда, откуда пришёл катехин. В одной молекуле EGCG сходятся два маршрута с разными узкими местами.
Что с этим делать
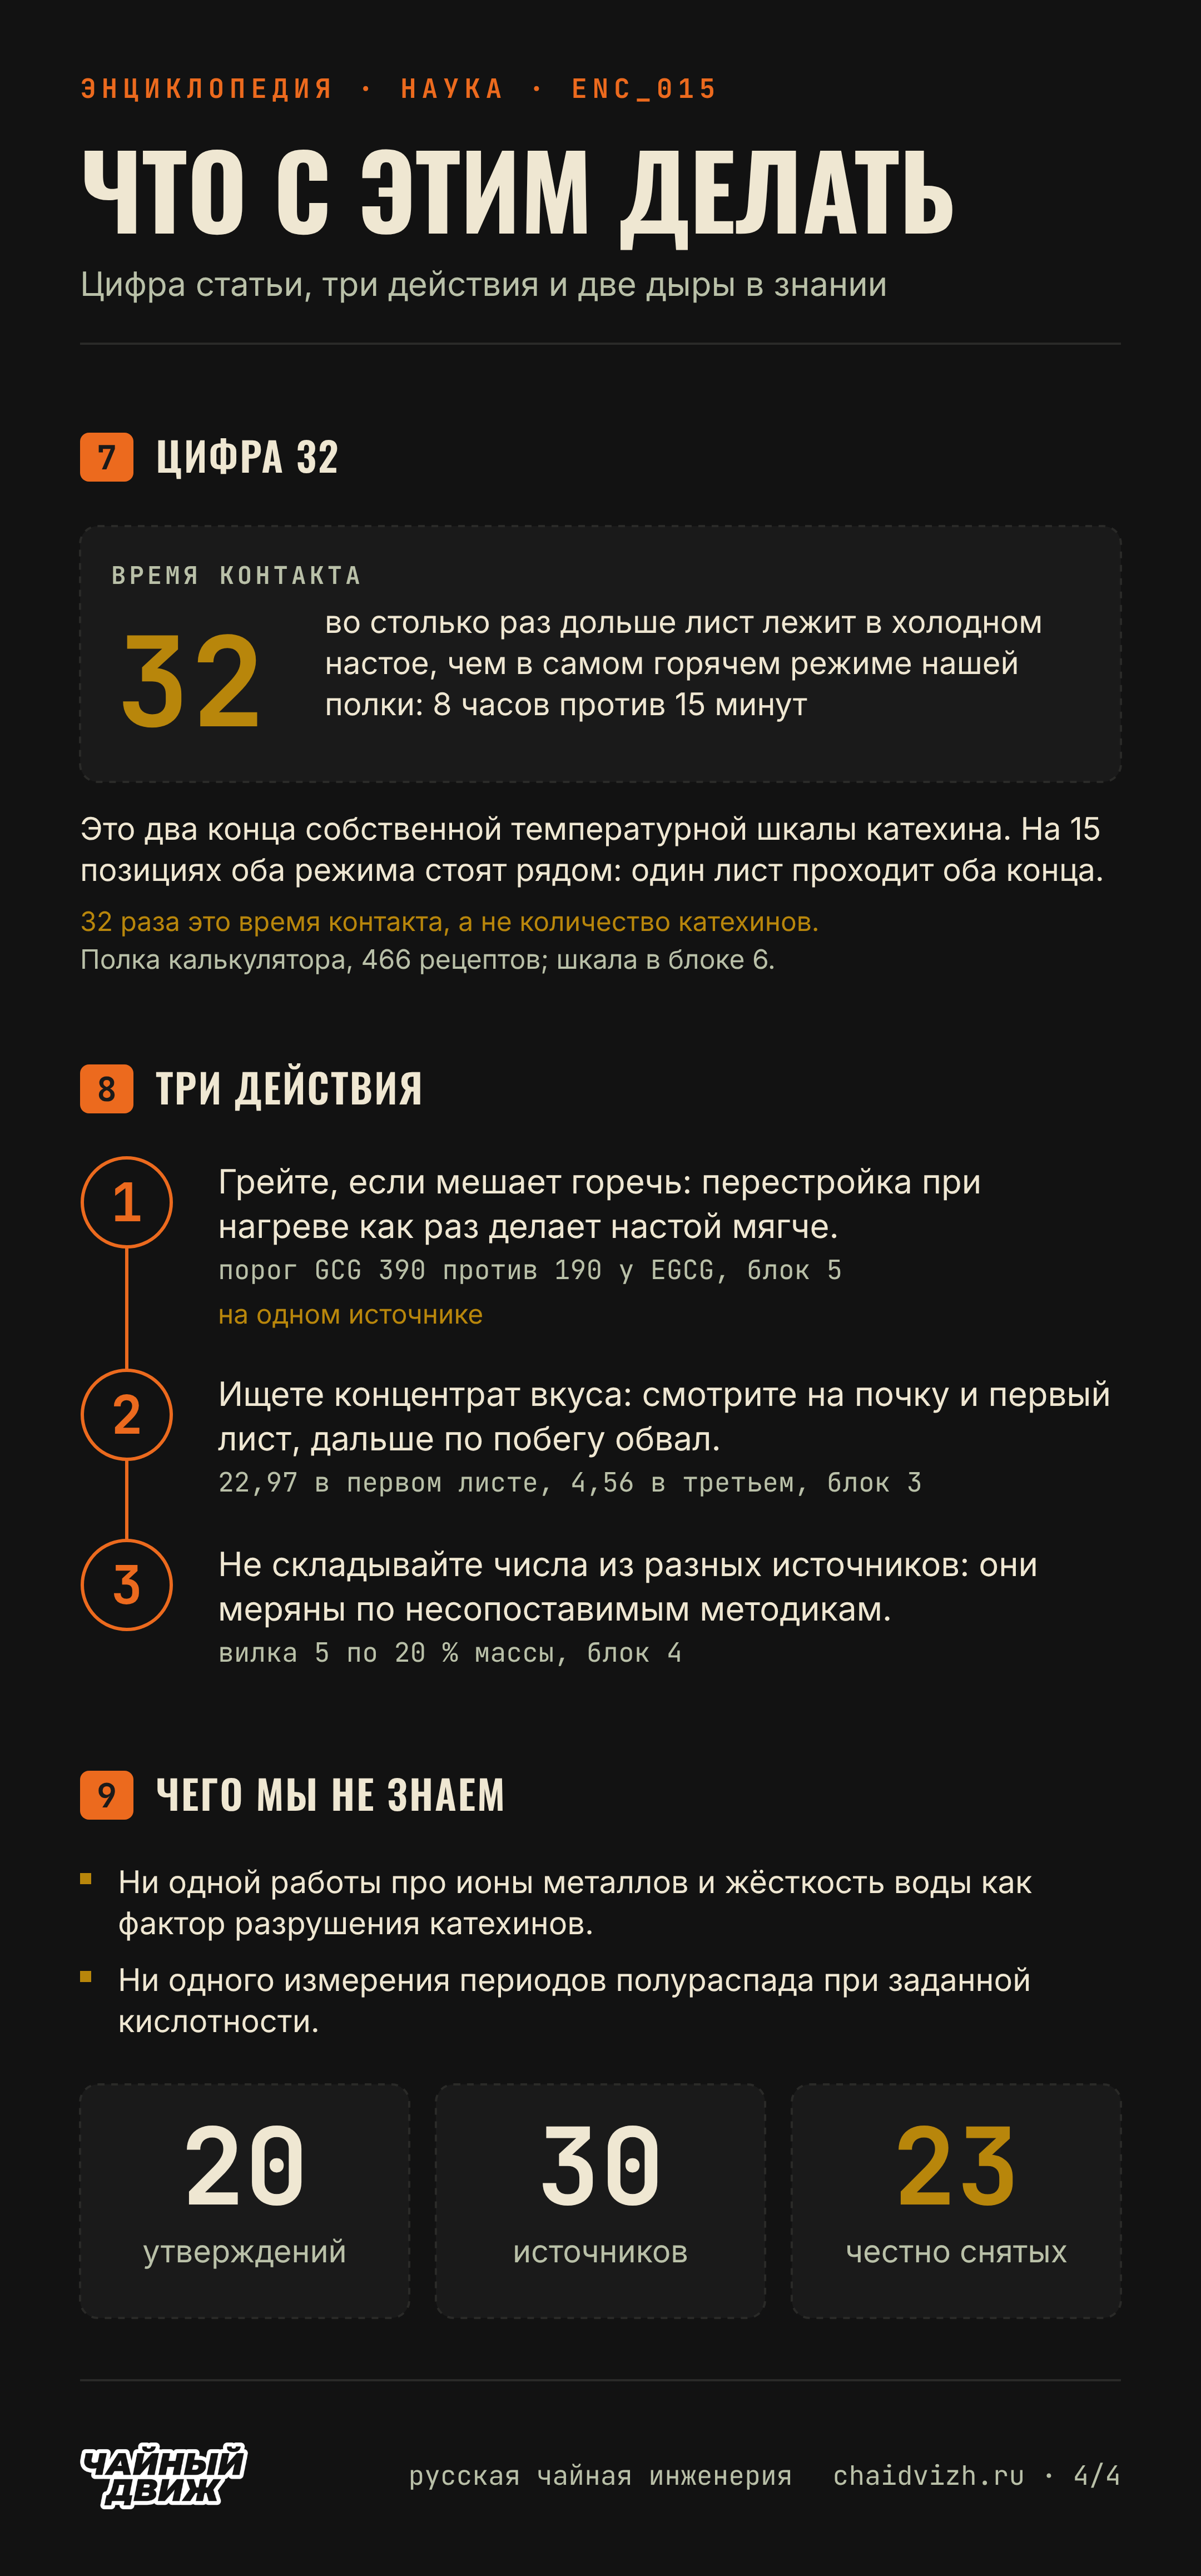
Грейте, если мешает горечь: перестройка при нагреве как раз делает настой мягче.
Ищете концентрат вкуса, смотрите на почку и первый лист, дальше по побегу обвал.
Не складывайте числа из разных источников: они меряны по несопоставимым методикам.
В 32 разаВо столько дольше лист лежит в холодном настое, чем в самом горячем режиме нашей полки. Это два конца собственной температурной шкалы катехина.
Чего мы не знаем
Ни одной работы про ионы металлов и жёсткость воды как фактор разрушения катехинов. И ни одного измерения периодов полураспада при заданной кислотности.
Катехины это не одно вещество, а класс: флаван-3-олы, восемь родственных молекул на общем скелете из трёх колец. Различаются они двумя независимыми деталями: сколько гидроксилов на боковом кольце и висит ли на молекуле остаток галловой кислоты. Всё остальное в чайной химии катехинов вытекает из этих двух деталей.
Разбор
Класс, а не вещество
Скелет один: бензольное кольцо A, сросшееся с пирановым кольцом C, и подвешенный к нему замещённый фенил, кольцо B. Систематически это 2-фенил-3,4-дигидро-2H-1-бензопиран-3-ол. Признаков класса три: нет двойной связи между вторым и третьим углеродом, есть гидроксил при третьем, нет карбонила при четвёртом. Второй и третий углерод хиральны, стереоизомеров четыре, и в природе почти всё это 2R-формы.
Две приставки и четыре угла
Названия катехинов кажутся жаргоном, а это сетка из двух осей. Приставка «галло-» означает, что на кольце B не два гидроксила, а три, в положениях 3', 4' и 5'. Окончание «-галлат» означает, что к гидроксилу при третьем углероде пришит сложным эфиром остаток галловой кислоты. Две двоичные оси дают четыре угла, в каждом пара цис и транс, отсюда и восемь имён: C, GC, CG, GCG и их эпи-двойники EC, EGC, ECG, EGCG.
«Эпи» это не «другой», это цис
Приставка «эпи» не значит «похожий». Она задаёт взаимное расположение заместителей при втором и третьем углероде: катехин это 2R,3S, транс, эпикатехин это 2R,3R, цис. Дальше пара идёт одинаково: галлокатехин транс, эпигаллокатехин цис.
Различие не косметическое. Именно оно, а не число гидроксилов, отвечает и за переход одной формы в другую при нагреве, и за разницу во вкусе. Откуда в живом листе берутся транс-формы, при этом толком неизвестно: учебное «LAR даёт транс, ANR даёт цис» у чайного куста не выполняется, оба чайных гена ANR дают смесь, то есть работают ещё и эпимеразой.
Галлоилирование это шаг, а не путь
Главная поправка к бытовому представлению: галлированные катехины, EGCG и ECG, не собираются по отдельной ветке, а получаются из готовых негаллированных отдельным шагом сверху.
Шаг двухступенчатый. Сначала фермент UGT84A22 сажает галловую кислоту на глюкозу и получает бета-глюкогаллин, переносную форму. Потом ацилтрансфераза семейства SCPL снимает галлоил с глюкозы и вешает на катехин. А тананаза умеет и то и другое: и отрывать галлоил, и переносить. Получается замкнутый круг, который так и называют: цикл галлоилирования и дегаллоилирования.
Отсюда неочевидное: доля галлированных катехинов это не «сколько успели», а положение равновесия.
Галловая кислота приходит с другой стороны
Сам катехин собирается по фенилпропаноидному пути, а галловая кислота приходит из шикиматного: из 3-дегидрошикимата под действием шикиматдегидрогеназы. В одной молекуле EGCG сходятся два разных маршрута, и узкое место у них разное.
Углерод кольца A имеет третье происхождение: он приходит из этиламина, отщеплённого от теанина, и светом этот поток управляется. У сеянцев под ярким светом около 90 процентов метки уходило в катехины, под слабым меньше 17, а 80 оставалось в теанине. Сам теанин разбирает статья [enc_013](/science/l-teanin).
Сломанный напарник работает лучше
В сборочном узле два белка-близнеца. Один каталитический, с обычной триадой S-D-H. У второго триада испорчена, T-D-Y, и сам он ничего не катализирует. Ожидание простое: чем целее фермент, тем больше продукта. Измерение даёт обратное: с испорченным напарником EGCG получается почти в шесть раз больше, чем с целым. Напарник не катализирует, он настраивает.
Вещество молодого листа
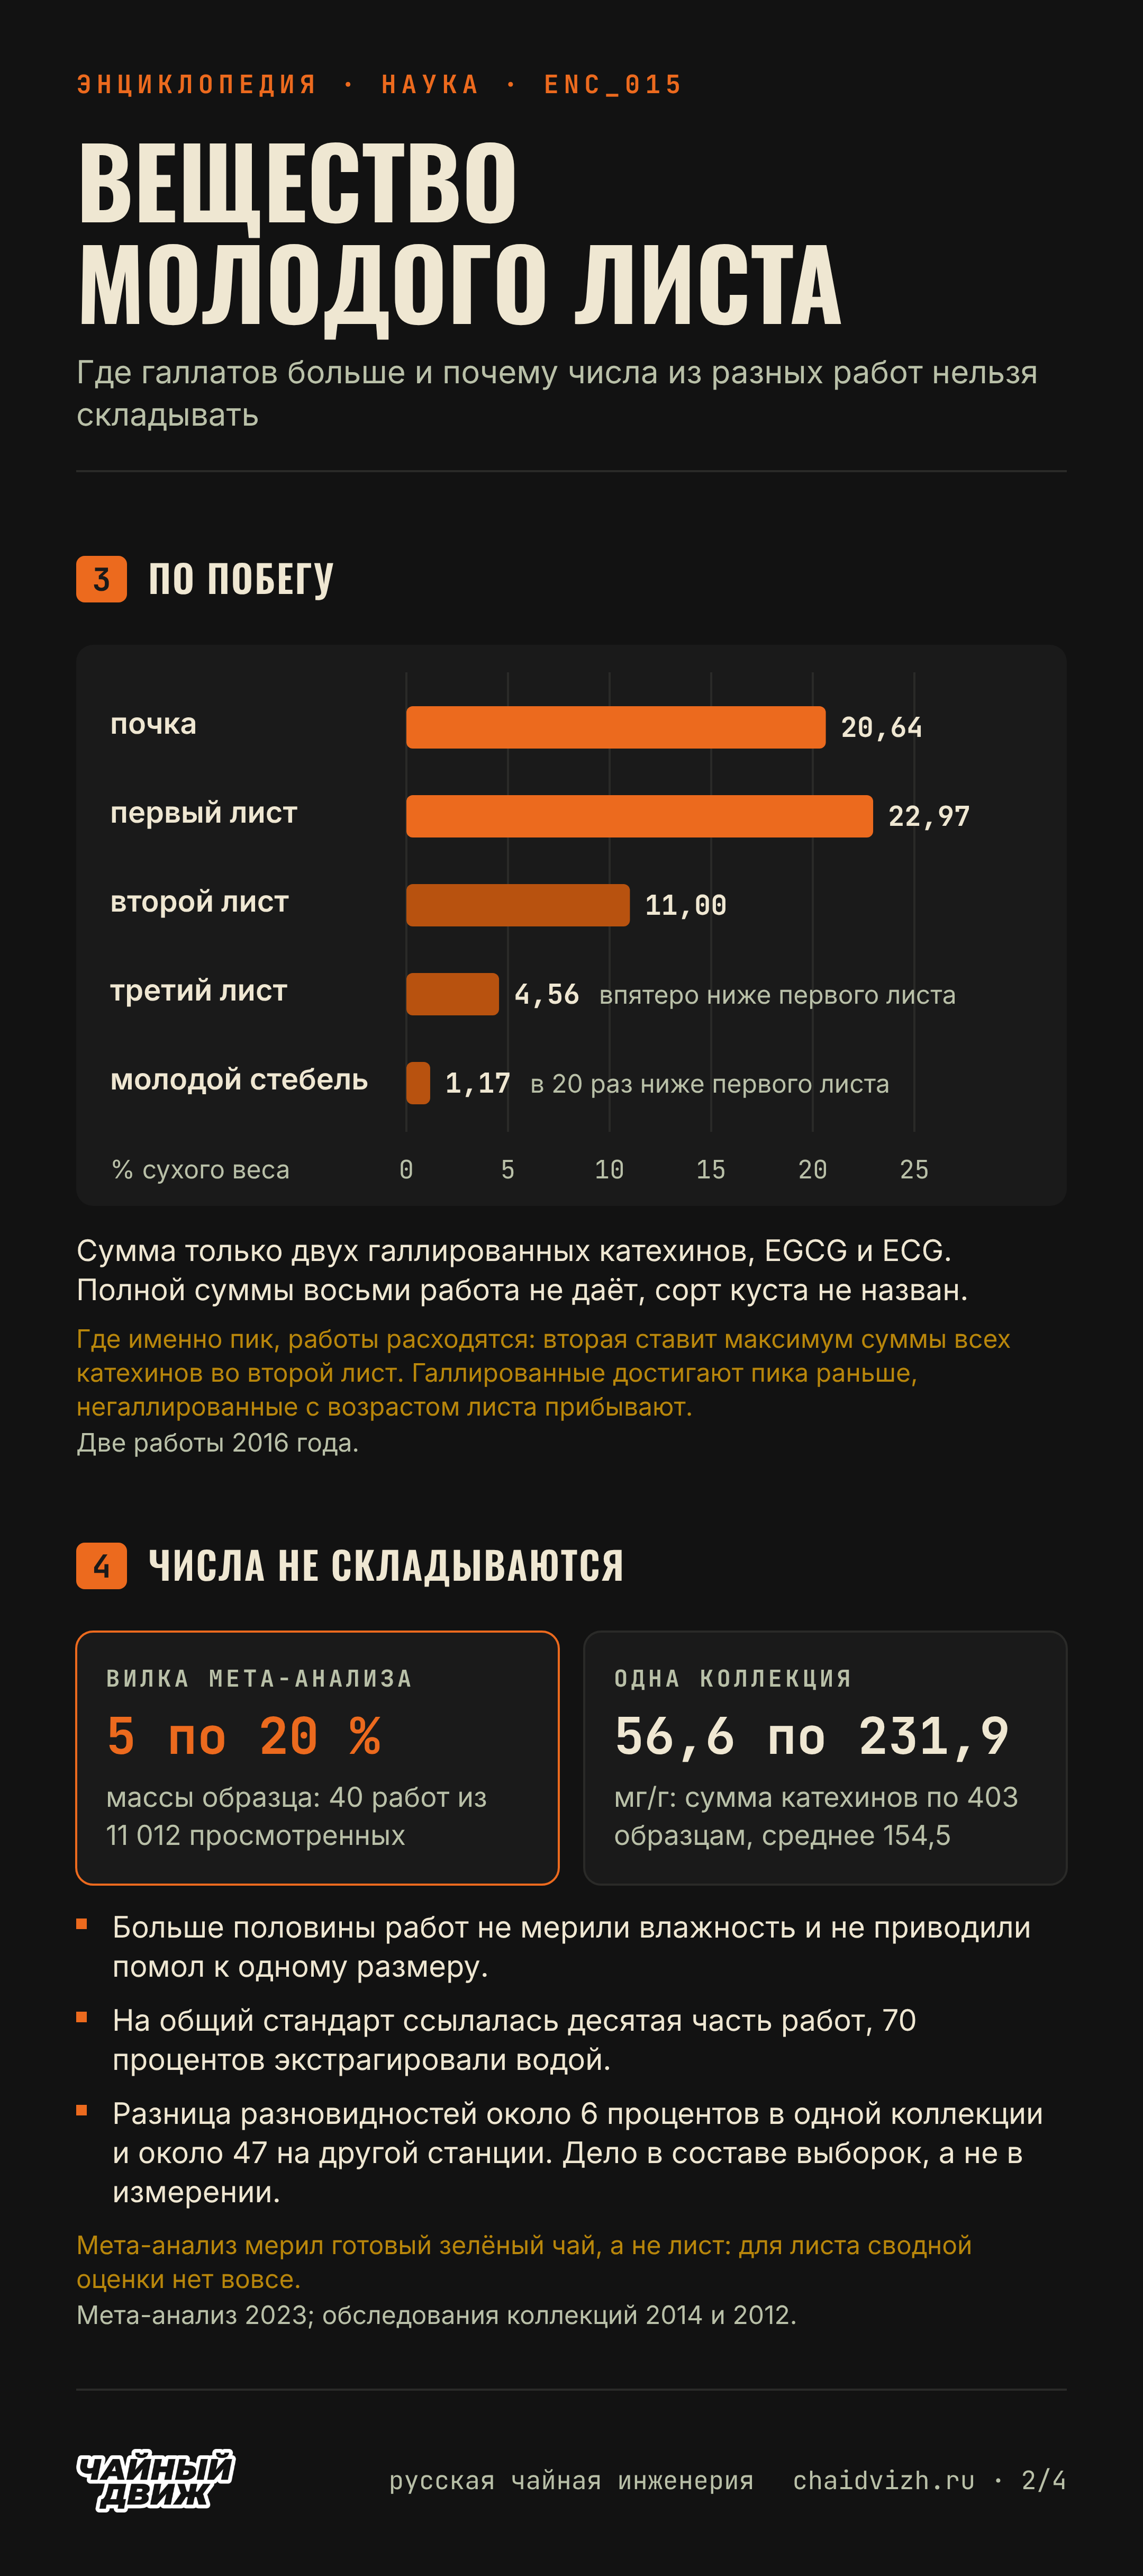
Галлированные катехины распределены по побегу резко неравномерно. В процентах сухого веса сумма EGCG и ECG составляет 20,64 в почке, 22,97 в первом листе, 11,00 во втором, 4,56 в третьем и 1,17 в молодом стебле: от первого листа к третьему падение впятеро, к стеблю в двадцать раз. Где именно пик, работы расходятся, и объяснение видно из данных: галлированные формы пикуют раньше, а негаллированные с возрастом листа прибывают.
Что даёт разновидность
По 403 образцам китайского генофонда сумма катехинов лежит от 56,6 до 231,9 мг/г при среднем 154,5, и разница между разновидностями там небольшая: китайская 152,9 против ассамской 162,8 мг/г, около шести процентов. Но у настоящих индийских типов на одной станции разрыв другой: 231, 202 и 157 мг/г. Дело в составе выборок, а не в измерении.
Отдельно стоит Y510: неэпи-катехины в свежем листе дают около двух процентов суммы, а у него 41,5, то есть неэпи-формы это не только след кипятка, это ещё и генетика.
Где у молекулы перегибы
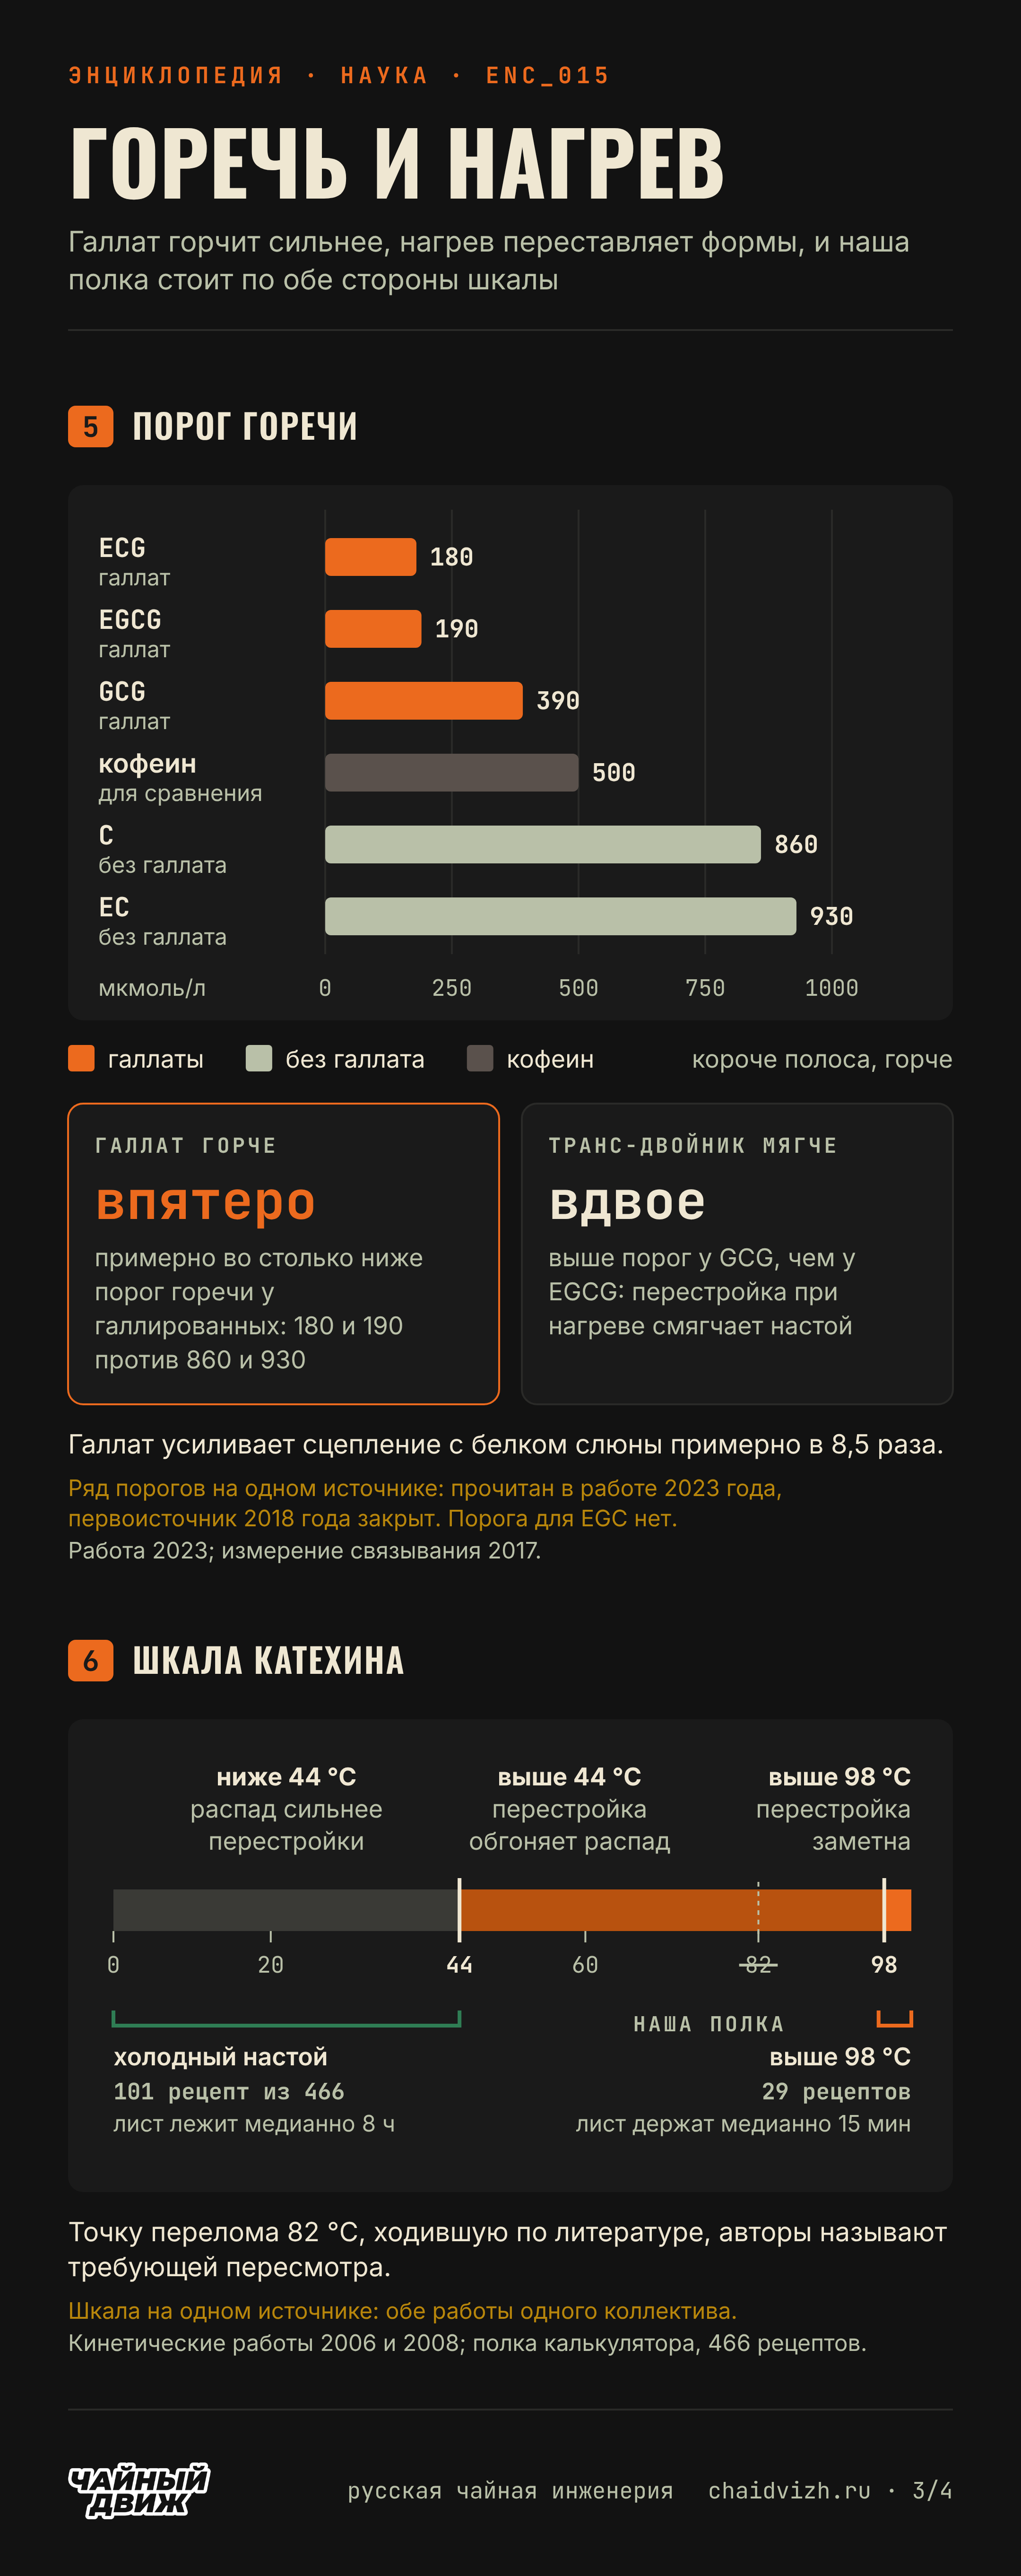
Распад и перестройка идут как реакции первого порядка по Аррениусу, но энергия активации разная: эпимеризация EGCG 117,6 кДж/моль, обратная 84,2, суммарный распад пары 42,8. Отсюда две особые температуры. Ниже 44 °C распад выражен сильнее перестройки, выше 44 перестройка его обгоняет, выше 98 становится заметной. Ходившую по литературе «точку перелома 82 °C» авторы называют требующей пересмотра. Что делает с катехинами конкретный режим заваривания, разбирает статья [enc_001](/science/antioksidanty).
Разрушенный EGCG при этом не исчезает, а сшивается сам с собой в теасинензины A и D и в оолонгтеанин дигаллат. Расхожая мысль, что продукты окисления «сильнее исходного», не подтверждается: по антиоксидантной ёмкости они слабее мономера, 0,99 и 0,91 против 1,13.
Что из этого чувствует язык
Порог горечи у галлированных катехинов примерно впятеро ниже, чем у негаллированных: 180 и 190 мкмоль/л против 860 и 930, кофеин со своими 500 стоит между ними. И самое красивое: GCG с порогом 390 вдвое мягче своего эпимера EGCG. Перестройка при нагреве сама делает настой менее горьким. Механизм измерен: галлоильная группа усиливает сцепление с белком слюны примерно в восемь с половиной раз. Полимеры и осаждение белка это статья про танины.
Зачем они кусту и почему числа не складываются
Не для нас. Катехины у чая индуцируемые: когда лист грызёт гусеница чайной пяденицы, куст наращивает выработку, и на таком обеде личинки растут хуже. Затенение сумму катехинов снижает, но долю галлатов поднимает; агротехника разбирается в разделе методов.
А складывать числа катехинов из разных работ нельзя. Мета-анализ 40 работ из 11 012 даёт вилку 5 по 20 процентов массы образца и вывод важнее вилки: больше половины работ не измеряли влажность и не приводили помол к одному размеру, десятая часть ссылалась на стандарт ISO 14502-2, а 70 процентов экстрагировали водой.
Числовая таблица
Катехины по позициям на побеге, проценты сухого веса
Ткань
EGCG
ECG
Сумма галлированных
Почка
11,78
8,86
20,64
Первый лист
14,17
8,80
22,97
Второй лист
7,38
3,62
11,00
Третий лист
2,88
1,68
4,56
Молодой стебель
0,72
0,45
1,17
Источник s14. Это сумма только двух галлированных катехинов, а не всех восьми: полной суммы катехинов работа не приводит. Культивар в ней не назван.
Пороги вкуса и константы устойчивости
Что измерено
Значение
Источник
Порог ECG
180 мкмоль/л
s21
Порог EGCG
190 мкмоль/л
s21, s22
Порог GCG
390 мкмоль/л
s21
Порог кофеина
500 мкмоль/л
s21
Порог C
860 мкмоль/л
s21
Порог EC
930 мкмоль/л
s21
Связывание с муцином, EGCG
BC50 0,2 мкмоль/л
s22
Связывание с муцином, EC
BC50 1,7 мкмоль/л
s22
Энергия активации эпимеризации EGCG
117,6 кДж/моль
s19
Энергия активации распада пары
42,8 кДж/моль
s19
Порога для EGC в этом ряду нет ни в одном доступном источнике.
Что это значит на практике
Наглядно
Восемь молекул, две детали: сетка имён и шаг, которым на катехин вешается галловая кислота.Вещество молодого листа: галлаты по побегу и почему числа из разных работ не складываются.Горечь и нагрев: пороги горечи катехинов и их собственная температурная шкала с перегибами 44 и 98 °C.Что с этим делать: цифра 32, три действия и чего мы не знаем.
Исследования
1. Катехины это флаван-3-олы, класс на скелете 2-фенил-3,4-дигидро-2H-1-бензопиран-3-ола, где конденсированное бензольное кольцо обозначают A, пирановое C, а подвешенный замещённый фенил B.
подтвержденомеханизм
рекомендации ИЮПАК дают определение флаван-3-олов и обозначение колец, но слов «катехин» и «эпикатехин» не содержат вовсе, поэтому за стереохимию отдельных катехинов на этот документ ссылаться нельзя. Сводного текстового правила нумерации положений там тоже нет, нумерация задана рисунками скелетов. Второй источник это обзор по флаван-3-олам вообще, не только по чайным.
2. У флаван-3-ола два хиральных центра, второй и третий углерод, отсюда четыре возможных стереоизомера, и почти все природные представители класса это 2R-формы.
подтвержденомеханизм
обзор насчитывает 34 описанных простых флаван-3-ола и относит к 2S-ряду лишь семь из них, встречающихся у нескольких растений вне чая. Дословная формулировка обзора перечисляет четыре набора дескрипторов подряд, без привязки к тривиальным именам, и её легко прочесть как определение приставки «эпи», чем она не является. Вторая работа даёт привязку дескрипторов к именам прямо, но на материале чайных ферментов, а не всего класса.
3. Имена катехинов задаются двумя независимыми осями: приставка «галло-» это третий гидроксил на кольце B в положениях 3', 4' и 5', окончание «-галлат» это остаток галловой кислоты, пришитый сложным эфиром к гидроксилу при третьем углероде.
подтвержденомеханизм
обзор описывает обе оси текстом, вторая работа перечисляет шесть основных катехинов чая поимённо и делит их на галлированные и негаллированные, но самого правила именования не формулирует. Восьмичленный список с GCG и CG в явном виде ни один из двух источников не приводит, он собирается из перечислений в разных работах подборки.
4. Приставка «эпи» задаёт цис-расположение заместителей: катехин это 2R,3S, транс-форма, эпикатехин это 2R,3R, цис-форма.
подтвержденомеханизм
чайная работа даёт разделение дословно, перечисляя транс-ряд (катехин и галлокатехин) и цис-ряд (эпикатехин, эпигаллокатехин и оба их галлата). Курируемая база подтверждает независимо: у эпикатехина определение прямо задано через 2R,3R-конфигурацию. Оба источника описывают только 2R-половину набора, дескрипторы 2S-форм здесь не приводятся.
5. Учебное разделение «LAR даёт транс-формы, ANR даёт цис-формы» у чайного куста не выполняется строго: оба чайных гена ANR дают смесь эпикатехина и катехина, то есть обладают эпимеразной активностью.
на одном источникеспорное
работа выполнена на рекомбинантных ферментах в кишечной палочке и в гетерологичных растительных системах, а не в живом чайном листе. Знаки оптической активности в оригинале записаны как плюс-эпикатехин и минус-катехин, что противоположно общепринятому для чая, и авторы сами называют полученные эпимеры неожиданными. Приводить их без этой оговорки нельзя: читатель решит, что в тексте опечатка. Пока это одна работа. Дополним раздел, когда появятся новые данные.
6. Галлированные катехины получаются из готовых негаллированных отдельным двухшаговым переносом галлоила через бета-глюкогаллин, и этот перенос обратим: тананаза умеет и отрывать галлоил, и вешать его обратно.
подтвержденомеханизм
цикл галлоилирования и дегаллоилирования назван в источнике именно так и описан как трёхступенчатый, где двухшаговой является только сборка. Три из четырёх источников принадлежат одному авторскому коллективу, и независимой является лишь работа по семейству SCPL, подтверждающая второй шаг превращениями EC в ECG и EGC в EGCG на рекомбинантных ферментах с пентагаллоилглюкозой как донором. Полный текст работы по тананазе закрыт, она сверена по реферату и по изложению в обзоре того же коллектива, а прямой формулировки об обратимости именно в живом чайном листе в доступном тексте нет.
7. Фермент, который делает переносную форму галлоила, к галловой кислоте не приспособлен избирательно: константа Михаэлиса у CsUGT84A22 для п-кумаровой кислоты ниже, чем для галловой.
на одном источникемеханизм
числовые значения константы напечатаны только внутри рисунка и в текстовом слое работы отсутствуют, поэтому здесь не приводятся. Утверждение дано дословной формулировкой авторов. Позднейший обзор того же коллектива формулирует иначе, называя наибольшую активность в отношении галловой кислоты, и это расхождение между первичной работой и её пересказом. Здесь взята первичная. Пока это одна работа. Дополним раздел, когда появятся новые данные.
8. Галловая кислота для галлоилирования приходит не из фенилпропаноидного пути, а из шикиматного: из 3-дегидрошикимата под действием шикиматдегидрогеназы с NADP как кофактором.
на одном источникемеханизм
ключевых генов-кандидатов названо четыре, от CsSDH1 до CsSDH4, а не два. Доказательство получено подавлением антисмысловыми олигонуклеотидами: галловая кислота, галлированные катехины и индекс галлоилирования достоверно падали. Это не нокаут и не полная делеция, а временное подавление. Работа вышла онлайн в 2024 году, печатный выпуск 2025. Пока это одна работа. Дополним раздел, когда появятся новые данные.
9. Сборочный узел состоит из двух белков, каталитического и некаталитического, и инактивирующая мутация в каталитическом сайте некаталитического напарника галлоилирование не гасит, а усиливает.
на одном источникемеханизм
измерено по площади пика EGCG в грубых экстрактах при совместной экспрессии: 4,8 умножить на десять в седьмой степени с напарником, несущим изменённую триаду T-D-Y, против 8,3 умножить на десять в шестой с напарником, сохранившим обычную триаду S-D-H. Площадь пика это не концентрация и не удельная активность, и в абсолютные величины она здесь не переводится. Материалом служили два вида камелии, чай и Camellia ptilophylla, у которой профиль катехинов сдвинут в неэпи-ряд. Пока это одна работа. Дополним раздел, когда появятся новые данные.
10. Углерод кольца A приходит в катехин из этиламина, отщеплённого от теанина, и свет управляет этим потоком: у сеянцев под 4000 люкс около 90 процентов метки уходило в катехины, под 150 люкс меньше 17, а около 80 оставалось в самом теанине.
на одном источникемеханизм
единственный меченый опыт выполнен в 1968 году, и с тех пор его никто не повторял ни углеродом-13, ни методами анализа метаболических потоков. Числа взяты из обзорного пересказа 2015 года, где они приведены со ссылкой на ту же работу 1968 года; полный текст первоисточника не читан. Срок опыта 28 суток. Обзор и первоисточник это одна линия, а не два независимых измерения. Пока это одна работа. Дополним раздел, когда появятся новые данные.
11. Катехины это вещество молодого листа: сумма EGCG и ECG падает от 22,97 процента сухого веса в первом листе до 4,56 в третьем и 1,17 в молодом стебле.
подтвержденоспорное
приведённая таблица содержит только два галлированных катехина, а не всю сумму восьми, и полной суммы катехинов работа не даёт вовсе. Культивар в ней не назван, указан только источник материала, сельскохозяйственный университет Юньнани. Вторая работа, независимого коллектива, помещает максимум суммы катехинов не в первый лист, а во второй, и прямо отмечает, что негаллированные катехины с возрастом листа растут. Оба наблюдения совместимы: галлированные формы пикуют раньше суммы, но какой именно ярус побега держит максимум, по двум работам не решается.
12. Разброс суммы катехинов по генофонду велик, от 56,6 до 231,9 мг/г при среднем 154,5, а разница между ботаническими разновидностями зависит от того, какие выборки сравнивают.
подтвержденоспорное
по 403 образцам китайской коллекции китайская разновидность даёт 152,9 плюс минус 16,2, ассамская 162,8 плюс минус 22,3, пубилимба 165,1 плюс минус 21,3 мг/г, и китайская достоверно ниже двух других при P меньше 0,05, но разрыв около шести процентов. На индийской станции при сравнении настоящих ассамских, камбоджийских и китайских типов разрыв другой: 231, 202 и 157 мг/г, то есть около 47 процентов. Разброс во второй работе указан как стандартная ошибка, а не отклонение, и это не одно и то же. Вероятная причина расхождения в том, что в китайской коллекции «ассамика» это в основном юньнаньский крупнолистный тип. Число культиваров во второй работе нигде не названо суммарно: по перечню их 30, включая три эталонных чистых сорта.
13. Неэпи-катехины это не только след нагрева: у сорта Y510 они дают 41,5 процента суммы катехинов свежего листа против 1,8 и 1,9 процента у двух сортов сравнения, при содержании GCG 54,5 мг/г.
на одном источникенаблюдение
сортов в работе было три, все из одного опытного сада в Фуане, провинция Фуцзянь, сбор первого флеша в марте 2015 года, материал «лист и почка». Обобщать 1,8 и 1,9 процента на сорта вообще нельзя, это два конкретных сорта сравнения. Средняя величина GCG около 1,5 мг/г, которую работа приводит рядом, ей не принадлежит: это пересказ обследования 403 образцов из источника s16. Общая фраза о том, что EGCG составляет около половины суммы катехинов, тоже взята работой у третьих авторов, а в самом Y510 EGCG даёт 69,6 из 171,7, то есть около сорока процентов. Пока это одна работа. Дополним раздел, когда появятся новые данные.
14. И распад, и перестройка катехинов идут как реакции первого порядка по Аррениусу, и у них две особые температуры, 44 и 98 °C.
на одном источникемеханизм
обе работы принадлежат одному коллективу и считаются одним источником. Энергии активации 117,6, 84,2 и 42,8 кДж/моль относятся к эпимеризации EGCG из эпи-формы в неэпи, к обратному переходу и к суммарному распаду именно пары EGCG и GCG, а не всех катехинов; для пары ECG и CG те же величины составляют 119,3, 96,2 и 41,6. Диапазон второй работы составной: собственный опыт покрывает 25 по 100 °C, верхняя часть до 165 °C взята из первой. Направление перестройки её реферат называет дважды, и оба раза это переход GCG в EGCG, то есть из неэпи в эпи; со стороны энергий активации ожидается обратное, и полный текст закрыт, поэтому направление здесь дано только так, как его формулирует источник, и своими словами не пересказывается. Ходившую в литературе точку перелома 82 °C авторы называют требующей пересмотра. Пока это одна работа. Дополним раздел, когда появятся новые данные.
15. Галлированные катехины горчат при впятеро меньшей концентрации, чем негаллированные, а перестройка при нагреве вкус смягчает: у GCG порог вдвое выше, чем у его эпимера EGCG.
на одном источникенаблюдение
ряд порогов, 170 для CG, 180 для ECG, 190 для EGCG, 390 для GCG, 500 для кофеина, 860 для C и 930 для EC, прочитан в работе 2023 года, которая приписывает его работе 2018 года; сама работа 2018 года закрыта и ни реферата, ни полного текста получить не удалось, то есть первоисточник не читан. Порога для EGC в ряду нет. Отдельная сложность в модальности: величина 190 мкмоль/л для EGCG выводится арифметически и из реферата работы Шарберта, Хольцманн и Хофмана 2004 года (Journal of Agricultural and Food Chemistry 52(11):3498-3508), но там это порог вяжущести, а не горечи, и смешивать два ряда нельзя; в список источников эта работа не вынесена, потому что её таблица порогов закрыта. Собственный вклад работы 2023 года это порог теасинензина A, 65 мкмоль/л. Пока это одна работа. Дополним раздел, когда появятся новые данные.
16. Галлоильная группа усиливает сцепление катехина с белком слюны примерно в восемь с половиной раз: концентрация полусвязывания с муцином составляет 0,2 мкмоль/л для EGCG против 1,7 для EC.
подтвержденомеханизм
величина BC50 в работе определена как концентрация белка при полумаксимальном связывании лиганда, то есть это концентрация белка, а не катехина. Полный набор значений (0,2 для EGCG, 0,3 для ECG, 1,5 для EGC, 1,7 для EC, 4,5 для рутина) получен титрованием очищенного муцина, а цельная слюна мерялась отдельными точками. Метод это количественная ЯМР-спектроскопия без меток. Вторая работа независимо описывает механизм усиления осаждения белка галлоилированием, но она посвящена вину, чайных катехинов и констант связывания не содержит и служит только подтверждением направления.
17. Разрушенный EGCG не исчезает, а сшивается в теасинензины A и D и в оолонгтеанин дигаллат, и по антиоксидантной ёмкости эти продукты слабее исходного мономера.
подтвержденонаблюдение
продукты получены в фосфатном буфере при pH 8 и 37 °C за 30 минут с последующей стабилизацией аскорбиновой кислотой, то есть в модельных лабораторных условиях, а не в чашке и не в цехе. Значения ёмкости составляют 1,13 для EGCG, 0,99 для теасинензина A и 0,91 для теасинензина D, а для оолонгтеанина дигаллата 0,78, то есть все продукты ниже мономера. Ходовое утверждение, что продукты окисления превосходят исходное вещество, этой работой опровергается. Вторая работа независимо описывает образование димеров и эпимеров EGCG в обычных лабораторных условиях, но её полный текст не читан и поимённого состава продуктов оттуда не берётся.
18. Катехины у чайного куста индуцируемые, а не только постоянно присутствующие: при поедании листа гусеницами чайной пяденицы их накопление растёт, и на таком листе личинки растут хуже.
на одном источникенаблюдение
работа сверена по реферату, полный текст закрыт. В самом реферате есть внутреннее несовпадение: заголовок называет тройку действующих веществ с эпигаллокатехина галлатом, предложение о накоплении в растении называет эпигаллокатехин без галлата, а опыт с искусственной диетой снова галлат. Без полного текста расхождение не снимается, поэтому здесь тройка не расшифровывается поимённо. Достоверность снижения роста личинок заявлена для опыта на растениях; для опыта на искусственной диете слово о достоверности в реферате отсутствует. Пока это одна работа. Дополним раздел, когда появятся новые данные.
19. При затенении суммарное содержание катехинов достоверно падает, но доля галлированных форм в сумме к четырнадцатым суткам растёт.
подтвержденонаблюдение
измерено на двух режимах затенения, снижение света на 50 по 60 и на 80 по 90 процентов, с отбором через 4 часа, 8 часов, 2, 8 и 14 суток. Числовых значений по отдельным катехинам работа не приводит, всё вынесено в рисунки, поэтому кратности здесь не даются. Рост относится именно к доле в сумме, а не к содержанию: подменять одно другим нельзя. Более ранняя работа второго коллектива даёт величину падения при пропускании 20 плюс минус 5 процентов света, более чем на 50 процентов для катехинов и более чем на 40 для флавонолов, но её полный текст не читан и число взято из цитирования в первой работе.
20. Сводного надёжного числа для содержания катехинов не существует, и причина методическая: работы не приводят образцы к общей влажности и помолу, а стандарт применяет меньшинство.
подтвержденонаблюдение
из 11 012 просмотренных статей в анализ вошли 40, из учреждений 14 стран, при этом 35 процентов работ выполнены в китайских научных организациях и 75 процентов использовали образцы из Китая, а сами образцы всей выборки происходят из 13 стран и регионов. Сводный диапазон 5 по 20 процентов массы образца дан по выборке в целом; привязать его к какому-то меньшему числу работ по доступному реферату нельзя. Более половины работ не измеряли влажность и не приводили помол к одному размеру, десятая часть ссылалась на ISO 14502-2, 70 процентов экстрагировали водой. Мета-анализ измерял готовый зелёный чай, а не лист как сырьё; для листа сводной оценки в литературе нет вовсе. Текст самого стандарта платный, и данные его воспроизводимости здесь не приводятся.
применяется к: Альбиносный культивар, у которого вход во флавоноидный путь подавлен на белой стадии побега
применяется к: Сырьё выращивают под укрытием, а укрытие сдвигает соотношение галлированных и негаллированных
применяется к: Неукрывное сырьё того же вида, точка сравнения по составу
Источники
s320 Rauter A.P., Ennis M., Hellwich K.-H., Herold B.J., Horton D., Moss G.P., Schomburg I. (2018). Nomenclature of flavonoids (IUPAC Recommendations 2017). Pure and Applied Chemistry, 90(9):1429-1486. DOI 10.1515/pac-2013-0919T2
s321 Luo Yu, Jian Yuqing, Liu Yingkai, Jiang Sai, Muhammad Daniyal, Wang Wei (2022). Flavanols from Nature: A Phytochemistry and Biological Activity Review. Molecules, 27(3):719. DOI 10.3390/molecules27030719T1
s322 European Bioinformatics Institute Chemical Entities of Biological Interest, записи CHEBI:15600 (+)-catechin и CHEBI:90 (-)-epicatechin. ChEBI, CHEBI:15600, CHEBI:90. источникT2
s323 Wang Peiqiang, Zhang Lingjie, Jiang Xiaolan, Dai Xinlong, Xu Lijuan, Li Tong, Xing Dawei, Li Yanzhi, Li Mingzhuo, Gao Liping, Xia Tao (2018). Evolutionary and functional characterization of leucoanthocyanidin reductases from Camellia sinensis. Planta, 247(1):139-154. DOI 10.1007/s00425-017-2771-zT1
s324 Ahmad M.Z., Li Penghui, She Guangbiao, Xia Enhua, Benedito V.A., Wan Xiao Chun, Zhao Jian (2020). Genome-Wide Analysis of Serine Carboxypeptidase-Like Acyltransferase Gene Family for Evolution and Characterization of Enzymes Involved in the Biosynthesis of Galloylated Catechins in the Tea Plant (Camellia sinensis). Frontiers in Plant Science, 11:848. DOI 10.3389/fpls.2020.00848T1
s325 Pang Yongzhen, Abeysinghe I.S.B., He Ji, He Xianzhi, Huhman D., Mewan K.M., Sumner L.W., Yun Jianfei, Dixon R.A. (2013). Functional Characterization of Proanthocyanidin Pathway Enzymes from Tea and Their Application for Metabolic Engineering. Plant Physiology, 161(3):1103-1116. DOI 10.1104/pp.112.212050T1
s326 Jiang Xiaolan, Liu Nana, Liu Yajun, Gao Liping, Xia Tao (2025). Exploration of the biosynthesis of galloylated catechins in tea plants. Beverage Plant Research, 5(1):e023. DOI 10.48130/bpr-0025-0009T1
s327 Cui Lilan, Yao Shengbo, Dai Xinlong, Yin Qinggang, Liu Yajun, Jiang Xiaolan, Wu Yahui, Qian Yumei, Pang Yongzhen, Gao Liping, Xia Tao (2016). Identification of UDP-glycosyltransferases involved in the biosynthesis of astringent taste compounds in tea (Camellia sinensis). Journal of Experimental Botany, 67(8):2285-2297. DOI 10.1093/jxb/erw053T1
s328 Chen Yifan, Jiang Changjuan, Yin Shixin, Zhuang Juhua, Zhao Yue, Zhang Lingjie, Jiang Xiaolan, Liu Yajun, Gao Liping, Xia Tao (2023). New insights into the function of plant tannase with promiscuous acyltransferase activity. The Plant Journal, 113(3):576-594. DOI 10.1111/tpj.16069T1
s329 Wang Liubin, Wang Yongxin, Wang Yueqi, Wu Liyun, He Mengdi, Mao Zhuozhuo, Liu Guanhua, Wei Kang, Wang Liyuan (2025). Two shikimate dehydrogenases play an essential role in the biosynthesis of galloylated catechins in tea plants. Horticulture Research, 12(4):uhae356. DOI 10.1093/hr/uhae356T1
s330 Chen Xiangxiang, Zhang Xue, Zhao Yue, Gao Liping, Wang Zhihui, Su Yanlei, Zhang Lingyun, Xia Tao, Liu Yajun (2025). Deactivating mutations in the catalytic site of a companion serine carboxypeptidase-like acyltransferase enhance catechin galloylation in Camellia plants. Horticulture Research, 12(3):uhae343. DOI 10.1093/hr/uhae343T1
s331 Ashihara Hiroshi (2015). Occurrence, Biosynthesis and Metabolism of Theanine (gamma-Glutamyl-L-ethylamide) in Plants: A Comprehensive Review. Natural Product Communications, 10(5):803-810. DOI 10.1177/1934578X1501000525T1
s332 Kito Makoto, Kokura Hiroshi, Izaki Junko, Sasaoka Kei (1968). Theanine, a precursor of the phloroglucinol nucleus of catechins in tea plants. Phytochemistry, 7(4):599-603. DOI 10.1016/S0031-9422(00)88234-5T1
s333 Xu Huanhuan, Wang Ya, Chen Yana, Zhang Pan, Zhao Yi, Huang Yewei, Wang Xuanjun, Sheng Jun (2016). Subcellular Localization of Galloylated Catechins in Tea Plants [Camellia sinensis (L.) O. Kuntze] Assessed via Immunohistochemistry. Frontiers in Plant Science, 7:728. DOI 10.3389/fpls.2016.00728T1
s334 Zhang Li-Qun, Wei Kang, Cheng Hao, Wang Li-Yuan, Zhang Cheng-Cai (2016). Accumulation of catechins and expression of catechin synthetic genes in Camellia sinensis at different developmental stages. Botanical Studies, 57(1):31. DOI 10.1186/s40529-016-0143-9T1
s335 Jin Ji-Qiang, Ma Jian-Qiang, Ma Chun-Lei, Yao Ming-Zhe, Chen Liang (2014). Determination of Catechin Content in Representative Chinese Tea Germplasms. Journal of Agricultural and Food Chemistry, 62(39):9436-9441. DOI 10.1021/jf5024559T1
s336 Sabhapondit S., Karak T., Bhuyan L.P., Goswami B.C., Hazarika M. (2012). Diversity of Catechin in Northeast Indian Tea Cultivars. The Scientific World Journal, 2012:1-8. DOI 10.1100/2012/485193T1
s337 Chen Changsong, Wei Kang, Wang Liyuan, Ruan Li, Li Hailin, Zhou Xiaogui, Lin Zhenghe, Shan Ruiyang, Cheng Hao (2017). Expression of Key Structural Genes of the Phenylpropanoid Pathway Associated with Catechin Epimerization in Tea Cultivars. Frontiers in Plant Science, 8:702. DOI 10.3389/fpls.2017.00702T1
s338 Wang Rong, Zhou Weibiao, Wen Ruth-Ann Huiyi (2006). Kinetic Study of the Thermal Stability of Tea Catechins in Aqueous Systems Using a Microwave Reactor. Journal of Agricultural and Food Chemistry, 54(16):5924-5932. DOI 10.1021/jf0611419T1
s339 Wang Rong, Zhou Weibiao, Jiang Xiaohui (2008). Reaction Kinetics of Degradation and Epimerization of Epigallocatechin Gallate (EGCG) in Aqueous System over a Wide Temperature Range. Journal of Agricultural and Food Chemistry, 56(8):2694-2701. DOI 10.1021/jf0730338T1
s340 Zhang Jian-yong, Cui Hong-chun, Feng Zhi-hui, Wang Wei-wei, Zhao Yun, Deng Yu-liang, Jiang He-yuan, Yin Jun-feng, Engelhardt U.H. (2023). Bitterness quantification and simulated taste mechanism of theasinensin A from tea. Frontiers in Nutrition, 10:1138023. DOI 10.3389/fnut.2023.1138023T1
s341 Delius Judith, Frank Oliver, Hofmann Thomas (2017). Label-free quantitative 1H NMR spectroscopy to study low-affinity ligand-protein interactions in solution: A contribution to the mechanism of polyphenol-mediated astringency. PLoS ONE, 12(9):e0184487. DOI 10.1371/journal.pone.0184487T1
s342 Rinaldi Alessandra, Moio Luigi (2021). Salivary Protein-Tannin Interaction: The Binding behind Astringency. В кн.: Chemistry and Biochemistry of Winemaking, Wine Stabilization and Aging. IntechOpen, глава. DOI 10.5772/intechopen.93611T2
s343 Alfke Julian, Kampermann Uwe, Kalinina Svetlana, Esselen Melanie (2021). Isolation and structural elucidation of dimeric epigallocatechin-3-gallate autoxidation products and their antioxidant capacity. European Food Research and Technology, 247(12):2961-2975. DOI 10.1007/s00217-021-03846-3T1
s344 Sang Shengmin, Lee Mao-Jung, Hou Zhe, Ho Chi-Tang, Yang Chung S. (2005). Stability of Tea Polyphenol (-)-Epigallocatechin-3-gallate and Formation of Dimers and Epimers under Common Experimental Conditions. Journal of Agricultural and Food Chemistry, 53(24):9478-9484. DOI 10.1021/jf0519055T1
s345 Li Xiwang, Zhang Jin, Lin Songbo, Xing Yuxian, Zhang Xin, Ye Meng, Chang Yali, Guo Huawei, Sun Xiaoling (2022). (+)-Catechin, epicatechin and epigallocatechin gallate are important inducible defensive compounds against Ectropis grisescens in tea plants. Plant, Cell and Environment, 45(2):496-511. DOI 10.1111/pce.14216T1
s346 Liu Linlin, Li Yingying, She Guangbiao, Zhang Xianchen, Jordan B., Chen Qi, Zhao Jian, Wan Xiaochun (2018). Metabolite profiling and transcriptomic analyses reveal an essential role of UVR8-mediated signal transduction pathway in regulating flavonoid biosynthesis in tea plants (Camellia sinensis) in response to shading. BMC Plant Biology, 18(1):233. DOI 10.1186/s12870-018-1440-0T1
s347 Wang YunSheng, Gao LiPing, Shan Yu, Liu YaJun, Tian YanWei, Xia Tao (2012). Influence of shade on flavonoid biosynthesis in tea (Camellia sinensis (L.) O. Kuntze). Scientia Horticulturae, 141:7-16. DOI 10.1016/j.scienta.2012.04.013T1
s348 Cao Yanyan, Mei Sifan, Huang Chuangsheng, Chen Ping (2023). Estimates of Catechins Content in Green Tea: A Review Based on Meta-analysis. Food Reviews International, 39(6):3172-3184. DOI 10.1080/87559129.2021.2009509T1
s349 International Organization for Standardization (2005). ISO 14502-2:2005. Determination of substances characteristic of green and black tea. Part 2: Content of catechins in green tea. Method using high-performance liquid chromatography, плюс Technical Corrigendum 1:2006. ISO, ISO 14502-2:2005. источникT2